Li YR, Chen Y, Zhu Y, Shen X, Yang L.
Front Immunol. 2026 Jul 28;17:1727910. doi: 10.3389/fimmu.2026.1727910.
Introduction
헬리코박터 파일로리(Helicobacter pylori, H. pylori)는 전 세계적으로 가장 흔한 세균성 병원체 중 하나로, 사람에게 만성 감염을 일으키며, 2015년부터 2022년까지 전 세계 성인의 감염 유병률은 43.9%로 추정되었다[1,2]. 감염은 일반적으로 소아기에 획득되며, 대부분의 감염자는 무증상이지만 H. pylori는 만성 위염과 소화성 궤양의 주요 원인이고, 위선암과 점막연관 림프조직(mucosa-associated lymphoid tissue, MALT) 림프종의 중요한 위험인자이다[3–6]. 감염의 위험인자로는 낮은 사회경제적 수준, 열악한 위생 환경 및 특정 민족적 배경 등이 있다. H. pylori를 성공적으로 제균하면 만성 위염과 소화성 궤양이 호전되고, 아스피린 복용자의 궤양 출혈 위험이 감소하며, 위암 발생률도 유의하게 낮아지는 것으로 확인되었다. 이러한 결과는 효과적인 H. pylori 관리가 임상적으로 매우 중요함을 보여준다[7–9].
임상적 증상 외에도 H. pylori는 위점막 면역에 광범위한 영향을 미친다. 감염은 면역세포의 유입과 전염증성 사이토카인의 분비를 포함한 강력한 선천면역 및 적응면역 반응을 유발한다. 이러한 면역반응에도 불구하고 세균은 흔히 지속적으로 생존하며, 이로 인해 만성 염증이 발생하여 위점막이 손상되고 궤양, 위선암 및 림프종의 위험이 증가한다[10–14]. 감염의 지속성은 H. pylori가 면역 감시를 회피하여 숙주의 위 내에 장기간 생존할 수 있는 서식처를 구축하는 능력이 있음을 보여준다.
H. pylori는 가혹한 위 내 환경에서도 지속적으로 집락화하고 질환의 병태생리에 기여할 수 있도록 다양한 병독성 기전을 진화시켜 왔다. 산성 환경인 위에서의 생존은 주로 요소분해효소(urease)에 의해 가능해진다. 요소분해효소는 요소를 가수분해하여 암모니아와 이산화탄소를 생성함으로써 세균 주변에 생존하기에 더욱 유리한 국소 미세환경을 조성한다[10–14]. 편모에 의한 운동성과 주화성(chemotaxis)은 세균이 위 점액층을 통과하도록 하며, 혈액형 항원 결합 부착소(blood group antigen-binding adhesin, BabA)와 시알산 결합 부착소(sialic acid-binding adhesin, SabA)를 포함한 부착인자는 위상피세포에 안정적으로 부착하도록 한다.
또한 H. pylori는 뮤신분해효소 활성을 지닌 효소를 생성하여 위 점액의 당단백질을 분해한다. 이는 세균이 점액층을 통과하는 것을 촉진하고 상피 표면에 더욱 쉽게 접근할 수 있도록 한다. 이러한 과정은 세균과 위상피 사이의 긴밀한 상호작용을 가능하게 함으로써 안정적인 집락 형성을 촉진하고 감염의 지속에 기여한다[10–14]. 세포독소 연관 유전자 A(cytotoxin-associated gene A, CagA)와 공포화 세포독소 A(vacuolating cytotoxin A, VacA) 등의 주요 병독성 인자는 상피 손상을 더욱 촉진하고 숙주의 신호전달 경로를 교란하며 세균의 장기적인 생존을 가능하게 한다. 이러한 병독성 결정인자는 만성 집락 형성의 기반을 마련하고 이후 H. pylori와 숙주 면역계 사이에서 일어나는 상호작용의 양상을 형성한다.
H. pylori와 숙주 면역계의 상호작용에는 상피세포, 대식세포 및 수지상세포(dendritic cell, DC)와 같은 선천면역세포, 그리고 T림프구와 B림프구를 포함한 적응면역 구성요소 사이의 복잡한 상호 소통이 관여한다[10,15–17]. 지질다당류(lipopolysaccharide, LPS)와 같은 세균 성분은 상피세포의 Toll 유사 수용체 4(Toll-like receptor 4, TLR4)를 활성화하여 선천면역 신호전달을 개시한다[18,19]. 그 결과 발생하는 면역세포의 유입과 인터루킨-1(interleukin-1, IL-1), IL-6 및 IL-8을 포함한 전염증성 사이토카인의 생성은 염증을 증폭시키고 조직 재형성에 기여한다. 적응면역 반응은 림프소포의 형성을 유도하고 체액성 면역과 세포매개성 면역을 모두 발생시키지만, H. pylori는 이러한 면역기전을 빈번하게 교란함으로써 세균이 제거되지 않도록 한다[17,20,21].
H. pylori는 감염의 지속을 가능하게 하는 다양한 면역회피 전략을 사용한다[16,22,23]. 이 세균은 CagA와 같은 효과인자를 주입하는 제4형 분비체계(type IV secretion system)를 통해 위상피세포를 직접 손상시키고, 세포자멸사를 유도하여 위점막 장벽의 기능을 저해할 수 있다. 또한 H. pylori는 면역반응을 조절하는 열충격단백질(heat shock protein, HSP)의 발현을 감소시키는 것을 비롯한 다양한 기전을 통해 숙주의 면역반응을 억제한다[16,22,23]. 이러한 면역회피 전략은 만성적인 집락 형성과 지속적인 염증을 가능하게 하며, H. pylori 관련 질환의 기전적 근거를 제공한다. 또한 효과적인 치료법을 개발하기 위해 위점막 면역반응을 이해하는 것이 중요함을 강조한다.
본 종설에서는 점막연관 불변 T세포(mucosal-associated invariant T cell, MAIT 세포)에 중점을 두고, 점막 면역과 H. pylori 사이의 복잡한 상호작용을 살펴보며, MAIT 세포의 고유한 기능적 특성과 Th1/Th17 이중 반응을 조명한다[24–26]. 또한 위 내 면역환경을 형성하고 세균의 지속 또는 제거에 영향을 미치는 Th1 세포, Th17 세포 및 조절 T세포(regulatory T cell, Treg 세포) 사이의 균형을 논의한다.
이와 함께 항생제 치료와 항생제 내성으로 인한 문제, 면역조절 접근법 및 점막 면역을 표적으로 하는 백신 개발을 포함한 치료 전략을 비판적으로 고찰하고, 새롭게 부상하는 MAIT 세포 기반 중재법을 강조한다. 마지막으로 단일세포 RNA 염기서열분석(single-cell RNA sequencing)과 공간전사체학(spatial transcriptomics) 등의 첨단 기술을 살펴보고, 면역 이질성이 개인맞춤형 접근법에 미치는 영향을 고찰한다. 아울러 향후 연구의 방향을 제시할 수 있도록 현재의 지식 공백과 핵심 연구 질문을 제시한다.
Mucosal immune responses in H. pylori infection
위상피는 H. pylori를 포함하여 섭취를 통해 유입되는 병원체에 대한 일차 방어선 역할 (first line of defense)을 하는 특수한 점막 장벽을 형성한다. 단일 층의 상피세포로 구성된 위상피는 조직의 완전성을 유지하고 위 내강과 그 아래에 위치한 면역 구획 사이의 신호 교환을 조절한다[27,28]. 이러한 장벽은 보호 점액층에 의해 더욱 강화되며, 점액층은 미생물을 포획하고 제거를 촉진함으로써 물리적·생화학적 방어막 역할을 한다. 또한 상피세포는 디펜신(defensin)과 카텔리시딘(cathelicidin)을 포함한 항균 펩타이드를 분비하며, 이들은 직접적인 살균 활성을 나타내는 동시에 국소 면역반응을 조절한다[29].
그러나 H. pylori는 이러한 장벽과 긴밀하게 상호작용하기 위한 전략을 진화시켜 왔다. 세균은 상피세포에 부착하고 제4형 분비체계를 통해 CagA와 같은 병독성 인자를 상피세포 내부로 전달한다. 이러한 상호작용은 상피의 완전성을 손상시키고 세포 신호전달 경로를 교란하며 전염증성 반응을 촉진한다. 위상피세포는 패턴인식수용체(pattern recognition receptor)를 통해 지질다당류(lipopolysaccharide, LPS)와 편모 단백질(flagellin) 등의 세균 성분을 감지한다. 이를 통해 면역세포를 유입시키고 활성화하는 선천면역 반응을 개시함으로써 숙주 방어와 세균의 지속적인 생존이 맞닿는 핵심적인 경계면을 형성한다.
위점막 장벽이 손상되면 H. pylori는 감염의 경과를 결정하는 강력한 선천면역 반응을 유도한다. Toll 유사 수용체(Toll-like receptor, TLR)와 NOD 유사 수용체(NOD-like receptor, NLR)를 포함한 패턴인식수용체가 세균 리간드를 인식하면 NF-κB 신호전달이 활성화된다. 이에 따라 IL-1β, IL-6, IL-8 및 종양괴사인자-α(tumor necrosis factor-α, TNF-α) 등의 전염증성 사이토카인과 IL-8 등의 케모카인이 생성되어 호중구와 단핵구의 유입을 조절한다. 호중구는 세균을 억제하는 데 기여하지만, 호중구에서 방출되는 활성산소종과 단백질분해효소는 주변 조직에도 부수적인 손상을 일으킨다[15,30].
대식세포와 수지상세포는 주요 포식세포이자 항원제시세포로 기능하며 염증 매개물질을 생성한다. 그러나 H. pylori는 이들 세포의 활성화 상태를 조절할 수 있다. 예를 들어 대식세포가 항염증성 표현형을 나타내도록 유도함으로써 세균의 지속적인 생존을 촉진할 수 있다. 자연살해세포(natural killer cell, NK 세포)와 감마-델타 T세포(γδ T세포) 등의 선천림프구도 활성화되어 감염 초기에 인터페론-γ(interferon-γ, IFN-γ)와 IL-17의 생성에 기여한다[17]. 이처럼 다양한 선천면역 방어기전에도 불구하고 H. pylori는 선천면역 신호전달 경로를 교란하여 흔히 만성 감염을 확립한다. 이는 H. pylori가 장기적인 집락 형성을 위해 숙주의 면역체계를 이용할 수 있음을 보여준다.
적응면역 역시 숙주와 병원체 사이의 상호작용을 형성하지만, H. pylori를 완전히 제거하는 멸균 면역(sterilizing immunity)을 획득하는 경우는 드물다. H. pylori 감염에서는 CD4+ 도움 T세포 아형, 특히 Th1 세포와 Th17 세포가 활성화되는 것이 특징이다. 이들 세포는 각각 IFN-γ와 IL-17을 생성하여 대식세포 활성화, 호중구 유입 및 지속적인 점막 염증을 유도한다[31]. 이와 동시에 조절 T세포(regulatory T cell, Treg 세포)가 증가하여 IL-10과 전환성장인자-β(transforming growth factor-β, TGF-β)를 분비하고 효과기 면역반응을 억제함으로써 면역관용과 세균의 지속적인 생존을 촉진한다[32].
Th1 세포, Th17 세포 및 Treg 세포 반응 사이의 균형은 숙주 면역반응이 감염에 대한 방어에 유리하게 작용할지, 아니면 만성 위염과 위암으로의 진행을 촉진할지를 결정하는 핵심 요인이다. 강력한 적응면역 활성화에도 불구하고 H. pylori 감염이 지속된다는 사실은 이 병원체가 정교한 면역회피 전략을 갖추고 있음을 보여주며, T세포의 조절과 기능을 표적으로 하는 잠재적인 치료 가능성을 시사한다.
Human MAIT cells and H. pylori infection
점막연관 불변 T세포(mucosal-associated invariant T cell, MAIT 세포)는 최근 선천면역과 적응면역의 경계에서 중요한 역할을 하는 세포로 주목받고 있으며, 특히 점막 조직에 풍부하게 존재한다[24,33,34]. 이들 세포는 다형성이 없는 MR1 분자에 의해 제시되는 미생물 유래 리보플라빈 대사산물을 인식하고 Th1 및 Th17과 유사한 효과기 기능을 모두 나타낸다. MAIT 세포는 IFN-γ, TNF-α 및 IL-17A와 같은 사이토카인을 생성함으로써 항미생물 방어에 기여하는 동시에 국소 염증반응을 증폭시킨다[33,35–38].
점막 장벽에 풍부하게 분포하는 MAIT 세포는 세균 및 바이러스 감염에 신속하게 반응하는 면역세포로 기능한다. MAIT 세포는 직접적인 항미생물 활성뿐 아니라 다른 면역세포 집단의 유입을 촉진하고 B세포 반응을 강화할 수 있어 체액성 면역과 백신의 효과를 뒷받침한다[39–42]. 또한 숙주 방어 외에도 조직 항상성을 유지하고 상처 치유를 촉진하는 역할을 한다. 그러나 MAIT 세포의 강력한 효과기 기능은 면역반응이 제대로 조절되지 않는 상황에서 면역병리에도 기여할 수 있다[43–46]. 따라서 MAIT 세포는 다양한 질환에서 방어적 과정과 병원성 과정 모두에 관여하는 면역학적 양날의 검이라 할 수 있다.
MAIT 세포는 H. pylori 감염에 대한 숙주의 면역반응에서 핵심적인 역할을 하며, 방어적 기능과 병원성 기능을 모두 나타낸다. H. pylori는 리보플라빈 합성 경로를 보유하고 있어 MAIT 세포의 T세포수용체(T-cell receptor, TCR)가 인식하는 리간드를 생성할 수 있다. 활성화된 MAIT 세포는 IFN-γ와 TNF-α 등의 전염증성 사이토카인을 분비하여 만성 위염의 특징적인 국소 염증을 촉진하고 추가적인 면역 효과기 세포의 유입을 유도한다[47](Figure 1).
FIGURE 1 Schematic illustration of the dual protective and pathogenic roles of MAIT cells in chronic H. pylori infection.
Gastric macrophages present riboflavin metabolites via MR1 to tissue-resident MAIT cells. Upon activation, MAIT cells polarize toward Th1-like (MAIT1) responses, producing IFN-g and TNF a that drive inflammation and tissue damage, or Th17-like (MAIT17) responses, producing IL-17A, IL-21, and IL-22 that promote epithelial defense and antimicrobial activity. Circulating MAIT cells are reduced in peripheral blood, whereas gastric tissue–resident MAIT cells are enriched, underscoring their compartmentalized role in disease progression.
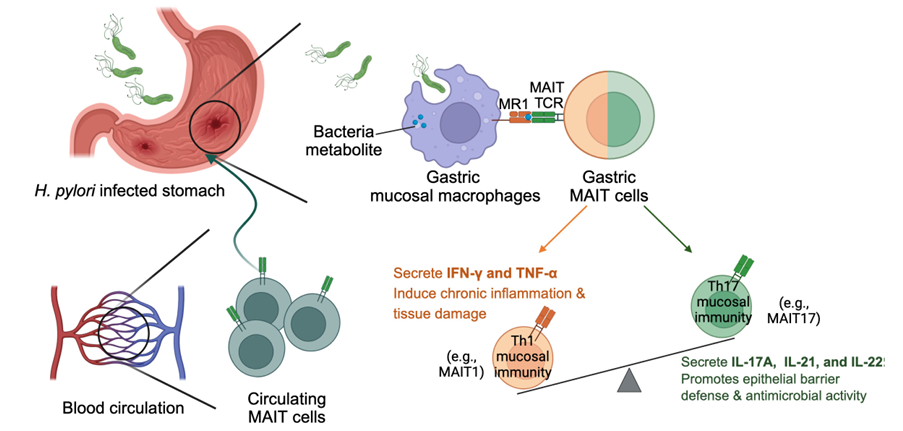
위점막의 MAIT 세포는 CD69와 CD103의 발현을 특징으로 하는 조직상주(tissue-resident phenotype) 표현형을 나타내며, 이는 국소 병원체에 신속하게 반응할 수 있는 준비 상태에 있음을 의미한다[47]. 기능 연구에 따르면 위점막과 말초혈액의 MAIT 세포는 모두 H. pylori를 인식할 수 있다. 구체적으로 CD8+ MAIT 세포와 CD4−CD8− 이중음성(double-negative) MAIT 세포 아형은 H. pylori에 감염된 대식세포에 반응하여 MR1 제한적인 방식으로 IFN-γ, TNF-α 및 IL-17A 등의 사이토카인을 생성하고 세포독성 활성을 나타낸다[47].
특히 MAIT 세포의 빈도는 전신과 점막 구획 사이에서 서로 다르게 나타난다. H. pylori 양성인 사람은 비감염 대조군보다 말초혈액 내 MAIT 세포 수가 유의하게 감소하지만, 위점막 내 MAIT 세포의 빈도는 비교적 일정하게 유지된다. 또한 위점막 MAIT 세포의 대부분(>80%)이 조직상주 표지자를 발현하는 반면, 말초혈액 MAIT 세포에서 이러한 표지자를 발현하는 비율은 3% 미만이다. 이는 MAIT 세포가 점막 면역반응에 신속하게 대응할 수 있도록 전략적으로 배치되어 있음을 보여준다[47].
말초혈액에서 MAIT 세포가 감소하는 현상은 H. pylori 감염 중 염증이 발생한 위점막으로 이들 세포가 선택적으로 이동하거나, 활성화로 인해 세포 빈도가 변화한 결과일 수 있다. 말초혈액을 순환하는 MAIT 세포와 조직상주 MAIT 세포 사이의 발생학적·이동학적 관계는 아직 완전히 밝혀지지 않았다. 그러나 현재까지의 근거에 따르면 두 세포 집단은 각각의 구획에 특이적인 표현형과 기능을 나타내며, 이들이 함께 점막 면역감시와 숙주 방어에 기여하는 것으로 보인다.
또 다른 연구에서는 H. pylori 연관 위염에서 T세포 수용체인 OX40(CD134)과 그 리간드인 OX40L(CD252)이 관여하는 보조자극 경로인 OX40/OX40L 신호축이 MAIT 세포 매개 점막 면역을 조절하는 핵심 인자로 제시되었다[48]. 건강한 대조군과 비교하여 감염 환자의 점막 MAIT 세포에서는 OX40 발현이 증가하고 수지상세포에서는 OX40L 발현 수준이 높게 나타났다. 이는 위 미세환경 내에서 보조자극 상호작용이 강화되어 있음을 시사한다[48].
이 경로의 활성화는 MAIT 세포의 증식을 촉진하고 상당한 양의 IL-9 생성을 유도하여 고도로 활성화된 표현형을 형성한다. 특히 MAIT 세포의 IL-9 분비는 위 염증 표지자와 양의 상관관계를 보여, IL-9을 생성하는 MAIT 세포가 질환의 병태생리에 기여할 가능성을 시사한다[48]. 이러한 결과는 OX40/OX40L 신호축이 MAIT 세포에 의해 유발되는 염증의 핵심 매개체임을 보여주며, H. pylori 유발 위염의 잠재적인 치료 표적으로 활용될 가능성을 제시한다.
종합하면, 이러한 연구 결과는 H. pylori 감염에서 MAIT 세포 반응이 면역 구획에 따라 서로 다르게 나타난다는 점을 강조하며, 전신 면역과 위점막 면역 사이에 존재하는 차이를 보여준다(Figure 1). 또한 말초혈액과 조직상주 구획에 존재하는 MAIT 세포의 기능적 특수성에 관한 중요한 근거를 제공하며, MAIT 세포가 숙주 방어를 매개하는 동시에 만성 위 염증에도 기여하는 이중적인 역할을 한다는 점을 보여준다.
Therapeutic insights and vaccination strategies targeting mucosal immunity
Human MAIT cell-based immunotherapy
MAIT 세포는 고유한 생물학적 특성, 조직상주성 및 리보플라빈 유래 항원에 대한 반응성으로 인해 새로운 면역치료 후보로서 점차 주목받고 있다. 기존 T세포와 달리 MAIT 세포는 사람 집단에서 거의 단형성을 보이며 매우 잘 보존된 MR1 분자에 의해 제한된다. 이러한 특성은 기존 T세포 기반 접근법에 내재된 HLA 제한성과 개인 간 변이라는 한계를 극복할 수 있는 ‘범용’ MAIT 세포 기반 치료법을 개발하는 데 강력한 근거를 제공한다[33,49–51].
면역치료에 MAIT 세포를 활용하기 위한 유망한 전략 중 하나는 합성 항원 전달체계를 이용하여 생체 내에서 MAIT 세포를 선택적으로 활성화하는 것이다. MR1에 강력하게 결합하는 리간드인 5-(2-옥소프로필리덴아미노)-6-D-리비틸아미노우라실[5-(2-oxopropylideneamino)-6-D-ribitylaminouracil, 5-OP-RU]은 강력한 T세포수용체 매개 MAIT 세포 활성화를 유도할 수 있는 리보플라빈 대사산물 유도체이다[52–54]. 5-OP-RU를 지질나노입자(lipid nanoparticle, LNP)에 봉입하면 항원제시세포로 효율적으로 전달할 수 있고, 불안정한 리간드를 빠른 분해로부터 보호하며, 시간적·공간적으로 조절된 방출이 가능해진다.
전임상 연구에서는 5-OP-RU가 MAIT 세포의 강력한 증식과 효과기 기능 활성화를 유도하여 IFN-γ, TNF-α 및 IL-17 등의 사이토카인 생성을 증가시키고, 항미생물 및 항종양 반응을 향상시키는 것으로 나타났다[25,54,55]. 서방형 제제는 국소 생체이용률을 더욱 높이고 점막이나 종양 부위에서 MAIT 세포의 활성화를 지속시키는 데 도움이 될 수 있다. 이러한 접근법은 단독요법으로 사용하거나 암 백신, 면역관문억제제 또는 기존 치료법과 병용함으로써 치료 효과를 높일 수 있으며, 생체 내 국소 환경에서 MAIT 세포 반응을 약리학적으로 조절하는 방법을 제공한다.
전신 투여 외에도 국소 전달 플랫폼은 전신 면역 활성화를 최소화하면서 위점막 내 항원 가용성을 높임으로써 MAIT 세포 기반 면역치료의 효과를 더욱 향상시킬 수 있다. 나노입자, 점막부착형 제제 및 미세침 기반 전달체계는 5-OP-RU와 같은 MR1 리간드를 MAIT17 분화를 촉진하는 면역조절 사이토카인과 함께 국소적으로 지속 방출할 수 있는 잠재력을 지닌다(Figure 2).
MAIT 세포를 MAIT17 유사 표현형으로 재프로그래밍하면 상피 장벽 기능을 강화하고 항균 펩타이드 생성을 증가시키며 호중구의 유입을 촉진함으로써 H. pylori에 대한 점막 방어 능력을 향상시킬 수 있다(Figure 2). 그러나 이러한 접근법은 아직 대부분 전임상 단계에 머물러 있다. 임상 적용에 앞서 위점막으로의 효율적인 전달, 표현형의 안정성 유지, 의도하지 않은 면역 활성화 가능성, 그리고 방어 면역과 과도한 염증 사이의 균형 등 중요한 과제를 해결해야 한다.
FIGURE 2 Strategies to reprogram and engineer MAIT cells for immunotherapy against H.pylori infection and its associated gastric diseases.
(A) Chronic H. pylori colonization–induced mucus layer degradation by bacterial mucinase, pepsin, and gastric acid leads to epithelial injury and predisposing to gastric malignancy and autoimmunity.
(B) Local delivery of 5-OP-RU and Th17-polarizing cytokines via nanoparticles, mucoadhesive patches, or microneedle patches to reprogram MAIT1 cells toward MAIT17 responses that enhance epithelial defense and antimicrobial activity.
(C) LNP mediated CRISPR transcriptional modulation silencing T-bet and upregulating RORgt in order to drive MAIT 17 polarization, neutrophil recruitment, and enhanced H.pylori clearance.
(D) In vivo chimeric antigen receptor (CAR) engineering of endogenous MAIT cells via lipid nanoparticle (LNP) delivery of CAR constructs, enabling direct targeting of H. pylori–driven pathology.
(E) Ex vivo CAR-MAIT engineering from peripheral blood mononuclear cell (PBMC)-, hematopoietic stem and progenitor cell (HSPC)-, or induced pluripotent stem cell (iPSC)-derived MAIT cells, allowing expansion, genetic modification, and adoptive transfer as an off-the-shelf therapeutic product.
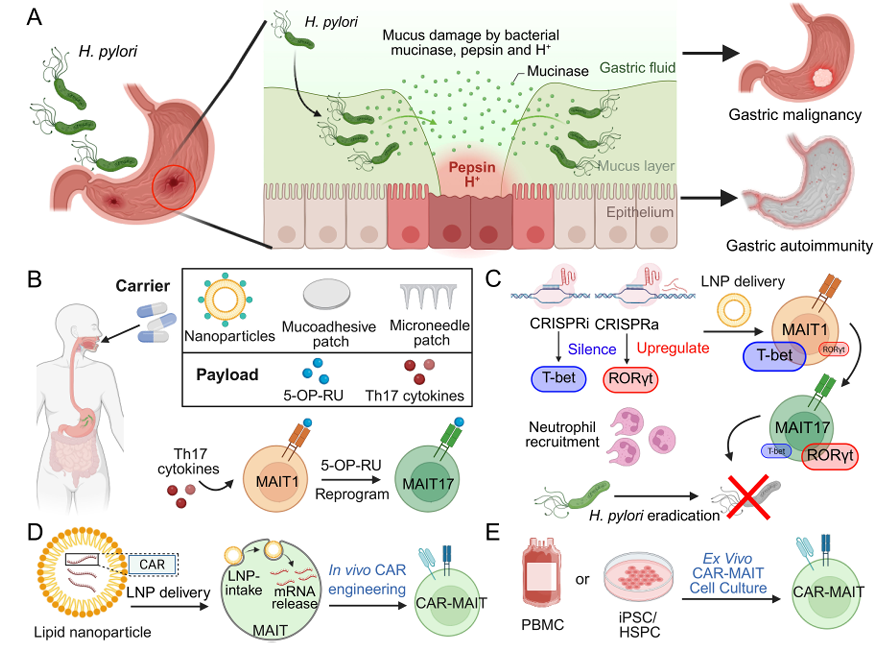
또한 MAIT 세포의 유전공학적 변형은 새롭게 부상하는 연구 분야이다. 지질나노입자를 통해 전달되는 CRISPR/Cas9 체계와 합성 mRNA 구조체를 포함한 생체 내 유전자 편집 기술의 발전은 T세포의 기능적 활성을 강화하고 생존 기간을 연장하며, 키메라 항원 수용체(chimeric antigen receptor, CAR)를 발현시켜 표적 특이성을 새롭게 부여할 수 있는 가능성을 제공한다[56,57]. MAIT 세포는 점막 조직으로 선택적으로 이동하고 신속한 효과기 반응을 나타내며, Th1 및 Th17 유형의 사이토카인을 모두 분비할 수 있는 고유한 능력을 지닌다. 이러한 특성으로 인해 유전공학적으로 변형된 MAIT 세포는 위암, 대장암 및 간담도암과 같이 점막 환경에서 발생하는 고형암을 표적으로 하는 데 특히 적합하다[26,58–60]. 이처럼 약리학적·유전학적 전략은 차세대 암 면역치료를 위한 새롭고 활용 범위가 넓은 플랫폼으로서 MAIT 세포의 잠재력을 보여준다.
기성품 형태로 즉시 사용할 수 있는(off-the-shelf) MAIT 세포 및 CAR 유전자 조작 MAIT(CAR-MAIT) 세포 치료제의 개발은 중개 면역치료 분야에서 특히 유망한 접근법이다[58,61–64]. MAIT 세포는 건강한 공여자나 다능성 줄기세포로부터 생체 외에서 효율적으로 증식시키고 유전공학적으로 변형할 수 있어, 기능이 우수하고 표준화된 세포치료제로 제조할 수 있다[56,59,65,66]. 이러한 세포는 암, 자가면역질환, 만성 궤양, 특히 H. pylori 관련 질환을 포함한 다양한 질환의 치료에 활용될 수 있다.
예를 들어 H. pylori에 의해 유발되는 위암은 입양 MAIT 세포치료(adoptive MAIT cell therapy)의 이상적인 표적이 될 수 있다. 이 경우 유전적으로 변형하지 않은 MAIT 세포의 고유한 항미생물 및 세포독성 기능을 활용하거나, CAR 유전자 조작 MAIT 세포가 종양연관항원을 표적으로 인식하도록 방향을 전환하여 치료 효과를 높일 수 있다.
MAIT 세포 기반 치료법의 주요 장점은 다형성이 없는 MR1 분자에 의해 제한된다는 점이다. 이는 HLA 불일치로 인한 문제를 피하고 이식편대숙주병(graft-versus-host disease, GvHD)의 위험을 최소화할 수 있도록 한다[65,67,68]. 이러한 특성으로 인해 환자별로 세포치료제를 별도로 제조할 필요 없이 모든 환자에게 적용 가능한 동종유래 기성품 세포치료제를 생산할 수 있으며, 신속하고 대규모로 임상에 적용하는 것도 가능해진다.
더욱이 MAIT 세포는 본질적으로 조직, 특히 점막 부위로 이동하는 능력을 지니며, Th1 및 Th17 관련 사이토카인을 분비하고 세포독성 기능을 수행할 수 있다. 따라서 위장관 질환을 표적으로 하는 데 매우 적합한 특성을 갖는다. MAIT 세포가 방어적 역할과 병원성 역할을 모두 하는 것으로 알려진 H. pylori 관련 질환에서는 만성 위염, 소화성 궤양 및 위암 등이 잠재적인 치료 대상에 포함될 수 있다.
특히 CAR 유전자 조작 MAIT 세포는 감염 관련 암뿐만 아니라 기존 CAR-T 세포치료에 잘 반응하지 않는 고형암으로 치료 범위를 확대할 수 있다. 이는 MAIT 세포의 조직상주성과 신속한 효과기 반응을 활용한 것이다[25,69]. 또한 MAIT 세포는 이미 확립된 세포 유전공학 플랫폼과 호환될 수 있어 차세대 범용 CAR-MAIT 세포 플랫폼을 개발할 수 있는 실현 가능성을 더욱 뒷받침한다.
종합하면, 이러한 특성들은 기성품 MAIT 세포 및 CAR-MAIT 세포 치료제가 H. pylori 관련 질환과 치료하기 어려운 다른 악성종양에서 기존 CAR-T 및 CAR-NKT 세포치료를 보완하거나, 나아가 이를 능가할 가능성이 있는 혁신적인 면역치료 전략임을 시사한다.
종합하면, 지질나노입자를 통해 전달되는 5-OP-RU를 이용한 항원 특이적 활성화, 효과기 기능을 강화하기 위한 생체 내 유전공학적 변형, 그리고 범용 기성품 MAIT 또는 CAR-MAIT 세포치료제의 개발을 포함한 이러한 전략들은 H. pylori 감염과 관련 질환을 치료하기 위한 차세대 세포 면역치료제로서 MAIT 세포가 지닌 임상 적용 가능성을 보여준다(Figure 2). 이러한 접근법은 MAIT 세포가 숙주 방어와 면역병리 모두에서 이중적인 역할을 하는 것으로 알려진 만성 위염, 소화성 궤양 및 위암을 포함한 H. pylori 유발 질환에서 특히 중요한 효과를 나타낼 수 있다.
Antibiotic treatment and challenges with resistance
H. pylori 제균치료는 광범위한 항균제 내성을 극복하고 강력한 위산 억제를 확보할 수 있는 치료법을 중심으로 뚜렷하게 변화해 왔다. 2024년 미국소화기학회(American College of Gastroenterology, ACG) 진료지침은 항균제 감수성을 알 수 없는 초치료 환자에서 14일간의 최적화 비스무트 사제요법(bismuth quadruple therapy, BQT)을 우선적인 경험적 치료법으로 권고한다. 클래리스로마이신 기반 삼제요법은 마크롤라이드 감수성이 확인된 경우가 아니라면 사용하지 않아야 한다[70,71]. 레보플록사신을 포함한 치료법에도 이와 유사한 주의가 필요하다[72]. 또한 이 지침은 보노프라잔 기반 치료법과 리파부틴 삼제요법을 합리적인 대안으로 제시하며, 치료 후에는 모든 환자에서 제균 성공 여부를 확인하도록 권고한다.
유럽의 합의안도 이와 같은 방향을 제시한다. Maastricht VI/Florence 합의문은 항균제 감수성에 근거한 치료를 강조하며, 클래리스로마이신 내성률이 15%를 초과하는 지역에서는 클래리스로마이신 삼제요법을 사용하지 않도록 권고한다. 또한 일차치료와 구제치료를 결정하는 데 분자검사가 수행할 수 있는 역할을 강조한다[73]. 이러한 권고의 배경에는 일차 항균제 내성의 증가가 있다. 지역마다 상황은 다르지만, 2024년 발표된 전 세계 메타분석에서는 클래리스로마이신, 메트로니다졸 및 레보플록사신 등 흔히 사용하는 항균제에 대한 일차 내성이 상당한 수준인 것으로 나타났다. 이는 지역별 역학과 환자의 과거 항균제 사용력을 고려하여 치료법을 선택할 필요가 있음을 뒷받침한다[74].
유럽의 실제 임상 등록자료에 따르면, 진료지침에 부합하는 단일 캡슐 비스무트 사제요법을 10일간 시행하거나 클래리스로마이신·아목시실린·메트로니다졸 또는 티니다졸을 이용한 동시요법을 14일간 시행하면 치료 효과가 향상된다. 실제 임상에서 단기간의 삼제요법을 점차 사용하지 않게 되면서 전체 제균율도 증가하였다[75,76].
칼륨경쟁적 위산분비억제제(potassium-competitive acid blocker, PCAB) 기반 치료법은 불충분한 위산 억제로 인한 치료 실패를 보완한다. 미국에서는 무작위배정 임상시험 결과를 근거로 보노프라잔·아목시실린 이제요법과 보노프라잔·아목시실린·클래리스로마이신 삼제요법이 미국 식품의약국(Food and Drug Administration, FDA)의 승인을 받았다. 이러한 치료법은 위 내 pH를 더 높게 유지하며, 하루 1회 또는 2회 투여할 수 있는 치료 방식을 제공한다. 그러나 클래리스로마이신을 포함한 치료 패키지는 여전히 해당 항균제에 대한 감수성이 확인된 감염에서만 사용해야 한다[77–80].
해결해야 할 과제 중 하나는 신속한 비침습적 항균제 감수성검사의 확립이다. 배양검사가 여전히 표준검사이지만, 클래리스로마이신 내성을 예측할 수 있는 A2143G, A2142G 및 A2142C 등의 23S rRNA 돌연변이를 검출하는 대변 기반 분자검사는 환자별 맞춤치료를 더욱 신속하게 시행할 수 있도록 하며, 임상검사실에서도 점차 이용 가능해지고 있다. 합의 지침에서는 특히 배양검사 역량이 제한된 환경에서 이러한 분자검사의 역할이 확대되고 있음을 언급한다[73,81].
또한 ACG는 항균제 투여를 마친 후 최소 4주가 지난 시점에 요소호기검사, 대변항원검사 또는 조직검사를 이용하여 제균 성공 여부를 확인하도록 권고한다. 위음성 결과를 방지하기 위해 검사 전 약 2주 동안 양성자펌프억제제(proton pump inhibitor, PPI) 또는 PCAB 치료를 중단해야 한다[79].
Immunomodulatory therapies
면역조절 치료는 세균 제거를 촉진하고 염증을 줄이거나 치료 결과를 개선하기 위해 숙주의 면역반응 또는 위점막 미세환경을 변화시키는 중재를 의미한다. 이 절에서 다루는 접근법들은 서로 다른 생물학적 기전을 통해 작용하지만, 숙주 방어를 강화하거나 점막 항상성을 촉진함으로써 기존 항생제 치료를 보완한다는 공통된 목표를 지닌다. 이에 따라 프로바이오틱스는 주로 장내 미생물군과 점막 면역반응을 조절하고, 락토페린은 항미생물 및 면역조절 작용을 나타내며, 비타민 D는 항균 펩타이드의 생성을 유도하여 선천면역을 강화한다. 레바미피드는 점막 보호를 촉진하는 동시에 염증성 신호전달을 억제한다.
전통적인 항생제 치료 외에도 제균 효과를 높이고, 치료 순응도를 저해하는 항생제 관련 이상반응을 줄이며, 미생물군에 미치는 부수적인 영향을 완화할 수 있는 면역조절 접근법에 대한 관심이 증가하고 있다[73,79,82,83]. 현재 성인 진료지침은 이러한 접근법에 신중한 입장을 보인다. 2024년 미국소화기학회 진료지침은 치료 효과나 내약성을 개선하기 위해 프로바이오틱스를 일상적으로 권고할 만한 근거가 충분하지 않다고 결론지었다. 반면 Maastricht VI/Florence 합의문은 일부 프로바이오틱스 제제가 위장관 부작용을 줄이고 제균 효과를 다소 향상시킬 수 있음을 인정하면서도, 공생 미생물군의 항생제 내성 유전자 집합체(resistome)에서 내성이 선택될 가능성에 대한 우려를 함께 제기하였다[73,79]. 이러한 견해는 항균제 감수성에 근거한 항생제 치료 및 필수적인 제균 확인검사와 함께 면역조절제를 실용적이고 개별화된 방식으로 사용해야 한다는 방향을 제시한다.
여러 연구 결과는 면역조절 치료의 실현 가능성을 보여주었다. 예를 들어 최근의 여러 메타분석에서는 표준치료에 프로바이오틱스를 추가하는 것이 제균율 증가 및 이상반응 감소와 관련된 것으로 보고되었다. 그러나 그 효과의 크기는 사용한 균주, 용량 및 투여 시점에 따라 달랐다[83,84]. 메타분석 결과, Lactobacillus spp.와 Saccharomyces boulardii를 포함한 여러 미생물은 H. pylori에 직접적인 항균 작용을 하기보다는 주로 치료 관련 이상반응을 줄이고 치료 내약성을 개선하는 것으로 나타났다.
프로바이오틱스 외에도 철 결합 당단백질인 락토페린은 위 내 미세환경에서 항미생물 및 항염증 작용을 나타낸다. 보조치료로 락토페린을 기존의 삼제요법이나 순차치료에 추가한 임상시험에서는 H. pylori 제균 효과와 치료 내약성이 향상될 가능성이 제시되었다. 그러나 연구 결과가 일관되지 않아 현재의 치료 환경을 반영한 대규모 무작위배정 임상시험(randomized clinical trial, RCT)이 추가로 필요하다[85,86].
숙주 방어 펩타이드의 생성을 유도하는 것도 위 내 H. pylori 균량을 줄일 수 있는 방법이다. 이는 비타민 D3 수용체(vitamin D3 receptor, VDR)와 항균 펩타이드인 CAMP/LL-37의 발현을 증가시킴으로써 가능하다[87,88]. 경구 비타민 D3 투여와 기존 H. pylori 삼제요법을 병용하는 치료법을 평가한 임상시험이 시행되었으며, 그 결과는 아직 발표되지 않았다(NCT03142620).
치료 전략은 위점막 보호에도 초점을 맞추어 왔다. 점막보호제인 레바미피드는 위 내 프로스타글란딘 합성을 유도하고 NF-κB/IL-8 신호전달을 억제한다. 메타분석에서는 레바미피드를 이제요법에 추가하였을 때 H. pylori 제균율이 향상된 것으로 나타났지만, 삼제요법에 추가한 경우의 이점은 상대적으로 일관되지 않았다[89,90].
Vaccine development targeting mucosal immunity
현재 H. pylori에 대한 백신은 허가된 바 없지만, 점막 백신은 감염을 억제하고 항생제 사용을 줄이며 항생제 내성 발생에 대한 선택압을 완화하기 위한 우선순위가 높은 전략으로 여겨지고 있다[91]. H. pylori에 감염된 적이 없는 소아를 대상으로 3회 투여 경구 재조합 H. pylori 백신을 평가한 제3상 무작위배정 이중눈가림 위약대조 임상시험에서는 접종 후 1년째 71.8%의 예방 효과가 나타났으나, 3년째에는 55.8%로 감소하였다. 이 백신은 요소분해효소 B 소단위(urease B subunit)와 대장균(Escherichia coli, E. coli) 열불안정 장독소 B 소단위(heat-labile enterotoxin B subunit, LTB)의 융합단백질을 포함하며, 안전성과 면역원성이 확인되었다[92,93]. 이후의 종설에서도 이 연구는 소아 예방접종의 개념증명 연구로 지속적으로 인용되고 있지만, 이와 비교할 수 있는 성인 대상 백신 효능 자료가 부족하다는 점도 지적되고 있다[94].
H. pylori는 위점막에 집락을 형성하므로, 강력한 국소 및 전신 면역반응을 유도하기 위해 백신 항원을 점막 면역증강제와 함께 전달하는 방법이 흔히 사용된다. 대표적인 점막 면역증강제로는 콜레라 독소 B 소단위(cholera toxin B subunit, CTB), LTB 및 대장균 이중 돌연변이 열불안정 독소(E. coli double-mutant heat-labile toxin, dmLT) 등이 있으며, 이들은 강력한 점막 및 전신 면역반응을 유도하는 데 사용된다[95,96]. 전통적인 면역증강제 외에도 H. pylori가 생성하는 미니페리틴(miniferritin)인 호중구활성화단백질(neutrophil-activating protein, HP-NAP)이 백신 구성체에서 Th1 반응을 강화하기 위한 항원이자 면역자극제로 연구되고 있다[97,98].
백신 항원 후보에는 요소분해효소(UreA/UreB), CagA와 VacA 등의 병독성 인자, HpaA와 같은 부착인자 및 다중 에피토프 조합 등이 포함된다. 백신 플랫폼으로는 정제 단백질, DNA, 바이러스 또는 세균 벡터(예: Lactococcus 또는 Lactobacillus) 및 외막소포(outer-membrane vesicle)가 활용되고 있다[99–102]. 여러 백신 후보를 종합하면, 이미 감염된 성인을 대상으로 하는 치료 백신보다 병원체에 노출되기 전에 투여하는 예방 백신이 더 유망한 것으로 보인다. 이는 멸균적 제거를 방해하는 위점막의 면역관용과 H. pylori의 면역회피 기전 때문일 가능성이 있다[103–105].
그러나 여전히 해결해야 할 중요한 과제가 남아 있다. 소아 대상 경구 백신의 예방 효과는 시간이 지나면서 감소하였으며, H. pylori 균주의 다양성과 이 세균에 의한 면역조절은 장기적인 예방 효과를 어렵게 한다. 이는 폭넓고 지속적인 예방 효과를 유지하는 것이 중요함을 보여준다[91,93]. 또한 dmLT 및 이와 유사한 점막 면역증강제가 면역반응을 강화하지만, 대규모 소아 예방접종 사업에 적용하려면 최적의 투여량과 반응원성(reactogenicity) 양상을 확립해야 한다[106]. 예방 백신 임상시험에서는 투여 후 이상반응을 감시하고 안전성을 확인하기 위한 장기간의 추적관찰도 필요하다. 이러한 제한점들을 고려하면, 향후 백신 개발의 진전은 소아에게 적용하기에 적절한 투여 방식과 안전성의 범위 내에서 광범위하고 지속적인 예방 효과를 확보할 수 있는지에 달려 있다.
Prospects for combination strategies
현재까지의 자료에 따르면 비스무트 사제요법(bismuth quadruple therapy, BQT)은 비스무트 비포함 동시요법과 유사한 치료 효과를 나타낸다[70,107]. 일부 분석에서는 BQT가 다소 우수한 것으로 나타났는데, 이는 비스무트가 항균제 내성 감염에서도 추가적인 활성을 나타내기 때문일 가능성이 있다[108,109]. 전임상 연구에서는 비스무트염이 H. pylori의 금속 항상성을 방해하고 내성 균주에 대한 항균 활성을 강화할 수 있는 것으로 나타났다. 이는 비스무트가 항균제 내성의 영향을 완화하는 보조 약제로서 역할을 할 수 있음을 뒷받침한다[110,111].
칼륨경쟁적 위산분비억제제(potassium-competitive acid blocker, PCAB) 기반 치료법은 항균 범위를 줄이는 대신 개별 약제의 효과를 강화하는 방향으로 병용요법의 구성을 변화시키고 있다[77,112]. 보노프라잔·아목시실린 이제요법(vonoprazan-amoxicillin dual therapy, VA)은 하나의 항생제만 사용하면서도 강력한 위산 억제 효과를 제공한다. 이러한 장점을 바탕으로 적절한 환자에서는 14일간 사용할 수 있는 경험적 대체 치료법으로 진료지침에 제시되어 있다[78,107]. 일부 임상자료에서는 VA가 다른 PCAB 기반 치료법과 유사한 효과를 보이는 것으로 보고되었지만, 그 효과는 지역과 치료요법의 구성에 따라 달라지는 것으로 보인다[113,114].
두 가지 추가적인 전략을 통해 병용치료를 더욱 강화할 수 있다. 첫째, 배양검사 또는 23S rRNA와 gyrA 돌연변이를 검출하는 비침습적 대변 중합효소연쇄반응(polymerase chain reaction, PCR)을 이용한 감수성 기반 치료(susceptibility-guided therapy, SGT)는 지역 및 개별 환자의 항균제 내성 양상에 적합한 약제 조합을 선택할 수 있게 한다. 여러 임상시험과 메타분석에서 SGT는 단기간 삼제요법보다 우수한 효과를 보였으며, 항균제 내성률이 높은 환경에서는 검사가 가능할 경우 경험적 사제요법과 대등하거나 이를 능가하는 효과를 나타낼 수 있는 것으로 보고되었다[115–118].
둘째, N-아세틸시스테인(N-acetylcysteine, NAC)과 같이 생물막을 표적으로 하는 보조제는 항생제의 침투를 향상시킬 수 있다. NAC는 점액용해제로서 H. pylori 생물막의 세포외 고분자 기질을 파괴할 수 있으며, 이를 통해 항균제와 숙주 면역 방어로부터 보호받던 세균을 노출시킨다. NAC는 생물막의 구조를 불안정하게 함으로써 항생제가 세균에 더 잘 도달하도록 하고, 특히 지속성 또는 불응성 감염에서 제균 효과를 높일 수 있다[119,120]. 초기 임상시험과 메타분석에서는 일관되지 않은 결과가 보고되었지만, 표준 항생제 병용요법의 효과가 감소하는 여러 차례의 치료 실패 환자에서는 여전히 관심을 가질 만한 전략이다[119,120].
Future directions
고해상도 인체 지도화 기술은 H. pylori 감염에 대한 이해를 새롭게 정립하고 있다. 인체 위 조직에 단일세포 RNA 염기서열분석(single-cell RNA sequencing, scRNA-seq)과 공간전사체학을 함께 적용함으로써 이제 위샘 수준의 해상도로 상피세포 계통, 면역세포의 미세구역 및 사이토카인 신호회로를 규명할 수 있게 되었으며, 이를 통해 잠재적인 생체표지자와 치료 표적을 발굴할 수 있다[121]. 최근 H. pylori 관련 질환에 초점을 맞춘 단일세포 연구에서는 위염-화생-암종으로 진행하는 과정에서 나타나는 세포 상태의 전환을 더욱 상세히 규명하였다. 특히 염증성 섬유모세포, 변화된 상피세포 프로그램 및 골수계 세포의 분극이 강조되었으며, 이러한 변화는 제균치료 전후에 걸쳐 종단적으로 추적할 수 있을 것으로 보인다[122,123].
또한 메타게놈 분석과 scRNA-seq을 결합한 연구에서는 H. pylori 감염 위점막과 비감염 위점막을 비교함으로써, 조직 내 면역세포 상태를 해석하는 데 필요한 미생물군의 맥락을 함께 제시하였다. 다중오믹스 기반 환자 프로파일링은 개인별 제균치료 전략과 표적 면역조절제의 선택에 도움을 줄 수 있으며, 조직 또는 대변 생체표지자는 지속적인 감염 억제 여부를 조기에 평가할 수 있는 지표로 활용될 수 있다[121,124].
오가노이드 체계는 생리적 환경과 유사한 조건에서 숙주 표적 중재와 미생물군을 보존하는 중재를 통제된 방식으로 평가할 수 있게 한다. 최근 한 연구에서는 위 내강 측의 산성 환경을 유지하면서 H. pylori의 지속적인 집락 형성을 가능하게 하는 항상성 오가노이드-온-어-칩 플랫폼을 개발하였다. 이 플랫폼은 H. pylori가 위상피 내에서 생태적 지위를 확립하고 장기간 집락화하는 과정을 모형화할 수 있다[125]. 위 오가노이드를 이용하여 상피세포와 미생물 사이의 상호작용을 더욱 정교하게 구현하고 여기에 면역세포를 통합하면, 임상 적용에 앞서 장벽 회복, 면역증강제 및 면역치료 후보를 연구할 수 있는 실질적인 방향을 제시할 수 있다[126,127].
점막 면역에서 MAIT 세포가 수행하는 핵심적인 역할을 고려하면, H. pylori 감염에 대한 MAIT 세포 기반 치료는 유망한 미래 연구 방향이다. 사람의 위염 자료에서는 OX40/OX40L 신호축이 IL-9을 생성하는 고도로 활성화된 MAIT 세포 표현형을 유도하며, 이러한 반응이 위점막 염증과 상관관계를 보이는 것으로 나타났다[48]. 이 결과는 MAIT 세포 입양치료에서 보조자극 신호를 선택적으로 차단하는 전략을 검증할 수 있는 근거를 제시한다.
이와 함께 MR1 항원 처리 기술도 발전하고 있다. 특히 수용성 MR1 단량체를 이용하여 5-OP-RU를 효율적으로 전달하는 기술은 위 조직 내 MAIT 세포의 신호전달을 직접 시각화하고 조절할 수 있는 새로운 실험적 접근법을 제공한다[128]. 요약하면, 고해상도 인체 지도화 기술, 생리적 위 모형 및 실험적으로 조절 가능한 MAIT/MR1 생물학의 융합은 기존의 집단 수준 치료에서 벗어나 면역 정보에 기반한 조직 표적 치료로 전환할 수 있는 토대를 마련한다. 이러한 전략은 지속적인 H. pylori 제균과 이후 발생할 수 있는 위 질환의 예방을 함께 달성하는 것을 목표로 한다.
Concluding remarks
H. pylori는 위점막과 정교하게 조절된 상호작용을 통해 감염을 지속한다. 이 과정에서 상피 방어기전, 골수계 세포의 분극 및 조직상주 림프구가 무증상 보균부터 궤양과 암에 이르는 다양한 임상 경과를 결정한다. 이러한 생태계 내에서 MAIT 세포는 점막 면역이 지닌 가능성과 위험성을 동시에 보여준다. MAIT 세포는 미생물 대사산물에 신속하게 반응하지만, 위염에서는 OX40/OX40L 신호축을 통해 IL-9을 생성하는 고도로 활성화된 상태로 전환되어 병적 염증을 증폭시킬 수 있다[48,124].
임상적으로 가장 즉각적인 성과는 항균제 내성을 고려한 엄격한 진료를 통해 얻을 수 있다. 2024년 미국소화기학회(American College of Gastroenterology, ACG) 진료지침은 항균제 감수성을 알 수 없는 경우 14일간의 최적화 비스무트 사제요법을 기본적인 일차치료로 권고한다. 보노프라잔 기반 치료법과 리파부틴 삼제요법은 임상 상황에 따라 선택할 수 있는 대안이며, 치료 후에는 반드시 제균 성공 여부를 확인하도록 권고한다[70]. Maastricht VI/Florence 합의문은 검사가 가능한 경우 감수성에 근거하여 치료법을 선택할 것을 강조함으로써 이를 보완한다. 이러한 접근법은 다양한 항균제 내성 환경에서 항생제의 치료적 유용성을 보존하는 데 기여할 수 있다[73].
이제 차세대 기술은 병태생리 기전을 실제 치료로 전환하는 데 필요한 정밀한 분석 수단과 실험 플랫폼을 제공하고 있다. 인체 위 조직의 단일세포 및 공간 지도는 감염과 전암성 변화가 진행되는 과정에서 나타나는 상피세포 프로그램, 골수계 세포 상태 및 조직상주 림프구의 표현형을 규명한다[121]. 최근 연구에서는 고위험 화생성 위샘에 공간적으로 분포하는 26개 유전자 시그니처가 도출되었으며, 이는 제균치료 또는 질병 예방 임상시험에서 조기 생체표지자로 활용될 수 있다[129]. 이와 함께 메타게놈 분석과 단일세포 지도를 결합한 연구는 점막 면역을 미생물군의 맥락 속에서 통합적으로 이해할 수 있게 한다[124].
생체 외에서는 위 내강 측의 산성 환경을 보존하면서 H. pylori의 지속적인 집락 형성을 유지할 수 있는 항상성 오가노이드-온-어-칩 체계가 생리적인 실험 플랫폼을 제공한다. 이러한 플랫폼에서는 면역세포를 함께 배양할 수 있으며, 임상 적용에 앞서 항생제, 위산 억제 전략, 점막 면역증강제 및 MAIT/MR1 표적 중재법을 평가할 수 있다[125,128].
종합하면, 이러한 첨단 기술을 진료지침에 부합하는 항생제 치료, 선택적 면역조절제 및 백신 개발과 통합하는 것은 집단 수준의 획일적인 진료에서 벗어나 면역학적 정보에 기반한 조직 표적 방식으로 H. pylori 관련 질환을 관리할 수 있는 실질적인 경로를 제시한다.
<Abstract>
Helicobacter pylori (H. pylori) is a globally prevalent bacterium that causes chronic infection and, while often asymptomatic, is a major cause of gastritis, peptic ulcer disease, and a risk factor for gastric adenocarcinoma and mucosa-associated lymphoid tissue (MALT) lymphoma. Infection triggers robust innate and adaptive immune responses in the gastric mucosa, including immune cell recruitment and pro-inflammatory cytokine production; however, the bacterium frequently persists by evading host immunity through mechanisms such as CagA-mediated epithelial damage and modulation of heat shock proteins. This review examines the interplay between mucosal immunity and H. pylori, with a particular focus on the unique functional roles of mucosa-associated invariant T (MAIT) cells in orchestrating host defense. We also explore therapeutic strategies that leverage mucosal immunity to combat H. pylori, including immune-based interventions to eradicate infection and approaches targeting H. pylori-associated diseases, such as gastric cancer, autoimmune disorders, and peptic ulcer disease.
Keywords: Helicobacter pylori; cell therapy; gastric adenocarcinoma; immune evasion; mucosa-associated invariant T (MAIT) cell; mucosal immunity; ulcer.
References
1. Chen Y-C, Malfertheiner P, Yu H-T, Kuo C-L, Chang Y-Y, Meng F-T, et al. Global prevalence of Helicobacter pylori infection and incidence of gastric cancer between 1980 and 2022. Gastroenterology. (2024) 166:605–19. doi: 10.1053/j.gastro.2023.12.022
2. Borka Balas R, Meliț LE, Mărginean CO. Worldwide prevalence and risk factors of Helicobacter pylori infection in children. Child (Basel Switzerland). (2022) 9:1359. doi: 10.3390/children9091359
3. Wroblewski LE, Peek RMJ, Wilson KT. Helicobacter pylori and gastric cancer: factors that modulate disease risk. Clin Microbiol Rev. (2010) 23:713–39. doi: 10.1128/ CMR.00011-10
4. Reyes VE. Helicobacter pylori and its role in gastric cancer. Microorganisms. (2023) 11:1312. doi: 10.3390/microorganisms11051312
5. Farinha P, Gascoyne RD. Helicobacter pylori and MALT lymphoma. Gastroenterology. (2005) 128:1579–605. doi: 10.1053/j.gastro.2005.03.083
6. Hu Q, Zhang Y, Zhang X, Fu K. Gastric mucosa-associated lymphoid tissue lymphoma and Helicobacter pylori infection: a review of current diagnosis and management. biomark Res. (2016) 4:15. doi: 10.1186/s40364-016-0068-1
7. Lee Y-C, Liou J-M, Wu M-S, Wu C-Y, Lin J-T. Eradication of helicobacter pylori to prevent gastroduodenal diseases: hitting more than one bird with the same stone. Therap Adv Gastroenterol. (2008) 1:111–20. doi: 10.1177/1756283X08094880
8. Papatheodoridis G-V, Archimandritis A-J. Role of Helicobacter pylori eradication in aspirin or non-steroidal anti-inflammatory drug users. World J Gastroenterol. (2005) 11:3811–6. doi: 10.3748/wjg.v11.i25.3811
9. Lai KC, Lam SK, Chu KM, Wong BCY, Hui WM, Hu WHC, etal. Lansoprazole for the prevention of recurrences of ulcer complications from long-term low-dose aspirin use. N Engl J Med. (2002) 346:2033–8. doi: 10.1056/NEJMoa012877
10. Moyat M, Velin D. Immune responses to Helicobacter pylori infection. World J Gastroenterol. (2014) 20:5583–93. doi: 10.3748/wjg.v20.i19.5583
11. Wei Y-F, Li X, Zhao M-R, Liu S, Min L, Zhu S-T, et al. Helicobacter pylori disrupts gastric mucosal homeostasis by stimulating macrophages to secrete CCL3. Cell Commun Signal. (2024) 22:263. doi: 10.1186/s12964-024-01627-5
12. Huang Y, Hu Y. Impact of helicobacter pylori infection on the efficacy of ICIs in gastric cancer. BMC Cancer. (2025) 25:1101. doi: 10.1186/s12885-025-14436-x
13. Wang F, Meng W, Wang B, Qiao L. Helicobacter pylori-induced gastric inflam mation and gastric cancer. Cancer Lett. (2014) 345:196–202. doi: 10.1016/ j.canlet.2013.08.016
14. Deng R, Zheng H, Cai H, Li M, Shi Y, Ding S. Effects of helicobacter pylori on tumor microenvironment and immunotherapy responses. Front Immunol. (2022) 13:923477. doi: 10.3389/fimmu.2022.923477
15. Zhang Y,Yan Z,Jiao Y, Feng Y, ZhangS, Yang A. Innate immunity in Helicobacter pylori infection and gastric oncogenesis. Helicobacter. (2025) 30:e70015. doi: 10.1111/ hel.70015
16. Fan J, Zhu J, Xu H. Strategies of Helicobacter pylori in evading host innate and adaptive immunity: insights and prospects for therapeutic targeting. Front Cell Infect Microbiol. (2024) 14:1342913. doi: 10.3389/fcimb.2024.1342913
17. Müller A, Oertli M, Arnold IC. H. pylori exploits and manipulates innate and adaptive immune cell signaling pathways to establish persistent infection. Cell Commun Signal. (2011) 9:25. doi: 10.1186/1478-811X-9-25
18. Soares J-B, Pimentel-Nunes P, Roncon-Albuquerque R, Leite-Moreira A. The role of lipopolysaccharide/toll-like receptor 4 signaling in chronic liver diseases. Hepatol Int. (2010) 4:659–72. doi: 10.1007/s12072-010-9219-x
19. Zamyatina A, Heine H. Lipopolysaccharide recognition in the crossroads of TLR4 andCaspase-4/11mediated inflammatory pathways. Front Immunol. (2020) 11:585146. doi: 10.3389/fimmu.2020.585146
20. Siggins MK, Sriskandan S. Bacterial lymphatic metastasis in infection and immu nity. Cells. (2021) 11:33. doi: 10.3390/cells11010033
21. Wilson KT, Crabtree JE. Immunology of Helicobacter pylori: insights into the failure of the immune response and perspectives on vaccine studies. Gastroenterology. (2007) 133:288–308. doi: 10.1053/j.gastro.2007.05.008
22. Lina TT, Alzahrani S, Gonzalez J, Pinchuk IV, Beswick EJ, Reyes VE. Immune evasion strategies used by Helicobacter pylori. World J Gastroenterol. (2014) 20:12753 66. doi: 10.3748/wjg.v20.i36.12753
23. Sirit IS, Peek RM. Decoding the ability of Helicobacter pylori to evade immune recognition and cause disease. Cell Mol Gastroenterol Hepatol. (2025) 19:101470. doi: 10.1016/j.jcmgh.2025.101470
24. Fang Y, Chen Y, Niu S, Lyu Z, Tian Y, Shen X, et al. Biological functions and therapeutic applications of human mucosal-associated invariant T cells. J BioMed Sci. (2025) 32:32. doi: 10.1186/s12929-025-01125-x
25. Li Y-R, Zhou K, Wilson M, Kramer A, ZhuY, DawsonN, et al. Mucosal-associated invariant T cells for cancer immunotherapy. Mol Ther. (2022) 31:631–646. doi: 10.1016/j.ymthe.2022.11.019
26. Li Y-R, Shen X, Zhu Y, Lyu Z, Yang L. The microbiota shapes the life trajectory of mucosal-associated invariant T cells. Trends Microbiol. (2025) 33:903–919. doi: 10.1016/j.tim.2025.03.011
27. Alzahrani S, Lina TT, Gonzalez J, Pinchuk IV, Beswick EJ, Reyes VE. Effect of Helicobacter pylori on gastric epithelial cells. World J Gastroenterol. (2014) 20:12767 80. doi: 10.3748/wjg.v20.i36.12767
28. Salama NR, Hartung ML, Müller A. Life in the human stomach: persistence strategies of the bacterial pathogen Helicobacter pylori. Nat Rev Microbiol. (2013) 11:385–99. doi: 10.1038/nrmicro3016
29. Posselt G, Backert S, Wessler S. The functional interplay of Helicobacter pylori factors with gastric epithelial cells induces a multi-step process in pathogenesis. Cell Commun Signal. (2013) 11:77. doi: 10.1186/1478-811X-11-77
30. Frauenlob T, Neuper T, Regl C, Schaepertoens V, Unger MS, Oswald A-L, et al. Helicobacter pylori induces a novel form of innate immune memory via accumulation of NF-кBproteins.Front Immunol. (2023) 14:1290833. doi: 10.3389/fimmu.2023.1290833
31. Elbehiry A, Marzouk E, Abalkhail A. Unraveling Helicobacter pylori: insights into pathogenesis, immune evasion, and progress toward effective vaccination. Vaccines. (2025) 13:725. doi: 10.3390/vaccines13070725
32. Wu X, Gou G, Wen M, Wang F, Liu Y, Li L, et al. The immunoregulatory role of helper T cells in Helicobacter pylori infection. Front Immunol. (2025) 16:1593727. doi: 10.3389/fimmu.2025.1593727
33. Gao Y, Williams AP. Role of innate T cells in anti-bacterial immunity. Front Immunol. (2015) 6:302. doi: 10.3389/fimmu.2015.00302
34. Toubal A, Nel I, Lotersztajn S, Lehuen A. Mucosal-associated invariant T cells and disease. Nat Rev Immunol. (2019) 19:643–57. doi: 10.1038/s41577-019-0191-y
35. Zumwalde NA, Haag JD, Gould MN, Gumperz JE. Mucosal associated invariant T cells from human breast ducts mediate a Th17-skewed response to bacterially exposed breast carcinoma cells. Breast Cancer Res. (2018) 20:111. doi: 10.1186/s13058-018 1036-5
36. Walker LJ, Kang Y-H, Smith MO, Tharmalingham H, Ramamurthy N, Fleming VM, et al. Human MAIT and CD8aa cells develop from a pool of type-17 precommitted CD8+ T cells. Blood. (2012) 119:422–33. doi: 10.1182/blood-2011-05 353789
37. Serriari N-E, Eoche M, Lamotte L, Lion J, Fumery M, Marcelo P, et al. Innate mucosal-associated invariant T (MAIT) cells are activated in inflammatory bowel diseases. Clin Exp Immunol. (2014) 176:266–74. doi: 10.1111/cei.12277
38. Walkenhorst M, Sonner JK, Meurs N, Engler JB, Bauer S, Winschel I, et al. Protective effect of TCR-mediated MAIT cell activation during experimental autoim mune encephalomyelitis. Nat Commun. (2024) 15:9287. doi: 10.1038/s41467-024 53657-9
39. Leeansyah E, Ganesh A, Quigley MF, Sönnerborg A, Andersson J, Hunt PW, et al. Activation, exhaustion, and persistent decline of the antimicrobial MR1-restricted MAIT-cell population in chronic HIV-1 infection. Blood. (2013) 121:1124–35. doi: 10.1182/blood-2012-07-445429
40. De Biasi S, Gibellini L, Lo Tartaro D, Puccio S, Rabacchi C, Mazza EMC, et al. Circulating mucosal-associated invariant T cells identify patients responding to anti PD-1 therapy. Nat Commun. (2021) 12:1669. doi: 10.1038/s41467-021-21928-4
41. Tastan C, Karhan E, Zhou W, Fleming E, Voigt AY, Yao X, et al. Tuning of human MAIT cell activation by commensal bacteria species and MR1-dependent T-cell presentation. Mucosal Immunol. (2018) 11:1591–605. doi: 10.1038/s41385-018-0072-x
42. Jeffery HC, van Wilgenburg B, Kurioka A, Parekh K, Stirling K, Roberts S, et al. Biliary epithelium and liver B cells exposed to bacteria activate intrahepatic MAIT cells through MR1. J Hepatol. (2016) 64:1118–27. doi: 10.1016/j.jhep.2015.12.017
43. Gao M, Zhao X. Insights into the tissue repair features of MAIT cells. Front Immunol. (2024) 15:1432651. doi: 10.3389/fimmu.2024.1432651
44. du Halgouet A, Darbois A, Alkobtawi M, Mestdagh M, Alphonse A, Premel V, et al. Role of MR1-driven signals and amphiregulin on the recruitment and repair function of MAIT cells during skin wound healing. Immunity. (2023) 56:78–92.e6. doi: 10.1016/j.immuni.2022.12.004
45. Legoux F, Salou M, Lantz O. MAIT cell development and functions: the microbial connection. Immunity. (2020) 53:710–23. doi: 10.1016/j.immuni.2020.09.009
46. Hinks TSC, Zhang X-W. MAIT cell activation and functions. Front Immunol. (2020) 11. doi: 10.3389/fimmu.2020.01014
47. Booth JS, Salerno-Goncalves R, Blanchard TG, Patil SA, Kader HA, Safta AM, et al. Mucosal-associated invariant T cells in the human gastric mucosa and blood: role in Helicobacter pylori infection. Front Immunol. (2015) 6:466. doi: 10.3389/ fimmu.2015.00466
48. Ming S, Zhang M, Liang Z, Li C, He J, Chen P, et al. OX40L/OX40 signal promotes IL-9 production by mucosal MAIT cells during Helicobacter pylori infection. Front Immunol. (2021) 12:626017. doi: 10.3389/fimmu.2021.626017
49. Legoux F, Gilet J, Procopio E, Echasserieau K, Bernardeau K, Lantz O. Molecular mechanisms of lineage decisions in metabolite-specific T cells. Nat Immunol. (2019) 20:1244–55. doi: 10.1038/s41590-019-0465-3
50. Gnirck A-C, Philipp M-S, Waterhölter A, Wunderlich M, Shaikh N, Adamiak V, et al. Mucosal-associated invariant T cells contribute to suppression of inflammatory myeloid cells in immune-mediated kidney disease. Nat Commun. (2023) 14:7372. doi: 10.1038/s41467-023-43269-0
51. Godfrey DI, Uldrich AP, McCluskey J, Rossjohn J, Moody DB. The burgeoning family of unconventional T cells. Nat Immunol. (2015) 16:1114–23. doi: 10.1038/ ni.3298
52. Hagel JP, Garner LC, Bilton M, Mehta H, Leng T, Hackstein C-P, et al. Human MAIT cell activation in vitro. Methods Mol Biol. (2020) 2098:97–124. doi: 10.1007/978 1-0716-0207-2_7
53. Legoux F, Bellet D, Daviaud C, El Morr Y, Darbois A, Niort K, et al. Microbial metabolites control the thymic development of mucosal-associated invariant T cells. Science. (2019) 366:494–9. doi: 10.1126/science.aaw2719
54. Ruf B, Catania VV, Wabitsch S, Ma C, Diggs LP, Zhang Q, et al. Activating mucosal-associated invariant T cells induces a broad antitumor response. Cancer Immunol Res. (2021) 9:1024–34. doi: 10.1158/2326-6066.CIR-20-0925
55. Yan J, Allen S, McDonald E, Das I, Mak JYW, Liu L, et al. MAIT cells promote tumor initiation, growth, and metastases via tumor MR1. Cancer Discov. (2020) 10:124–41. doi: 10.1158/2159-8290.CD-19-0569
56. Li Y-R, Zhou Y, Yu J, Kim YJ, Li M, Lee D, et al. Generation of allogeneic CAR NKT cells from hematopoietic stem and progenitor cells using a clinically guided culture method. Nat Biotechnol. (2024) 43:329–344. doi: 10.1038/s41587-024-02226-y
57. Li Y-R, Zhu Y, Halladay T, Yang L. In vivo CAR engineering for immunotherapy. Nat Rev Immunol. (2025) 25:725–744. doi: 10.1038/s41577-025-01174-1
58. Li Y-R, Wilson M, Yang L. Target tumor microenvironment by innate T cells. Front Immunol. (2022) 13:999549. doi: 10.3389/fimmu.2022.999549
59. Li Y-R, Zhu Y, Chen Y, Yang L. The clinical landscape of CAR-engineered unconventional T cells. Trends Cancer. (2025) 11:520–539. doi: 10.1016/ j.trecan.2025.03.001
60. Godfrey DI, Le Nours J, Andrews DM, Uldrich AP, Rossjohn J. Unconventional T cell targets for cancer immunotherapy. Immunity. (2018) 48:453–73. doi: 10.1016/ j.immuni.2018.03.009
61. Chen Y, Zhu Y, Li Y-R. The Role of Innate T Cells in Cancer BT- Handbook of Cancer and Immunology. Rezaei N, editor. Cham: Springer International Publishing (2022) p. 1–18. doi: 10.1007/978-3-030-80962-1_365-1
62. Li Y-R, Brown J, Yu Y, Lee D, Zhou K, Dunn ZS, et al. Targeting immunosup pressive tumor-associated macrophages using innate T cells for enhanced antitumor reactivity. Cancers. (2022) 14:2749. doi: 10.3390/cancers14112749
63. Dogan M, Karhan E, Kozhaya L, Placek L, Chen X, Yigit M, et al. Engineering human MAIT cells with chimeric antigen receptors for cancer immunotherapy. J Immunol. (2022) 209:1523–31. doi: 10.4049/jimmunol.2100856
64. Bohineust A, Tourret M, Derivry L, Caillat-Zucman S. Mucosal-associated invar iant T (MAIT) cells, a new source of universal immune cells for chimeric antigen receptor (CAR)-cell therapy. Bull Cancer. (2021) 108:S92–5. doi: 10.1016/ j.bulcan.2021.07.003
65. Fang Y, Zhu Y, Kramer A, Chen Y, Li Y-R, Yang L. Graft-versus-host disease modulation by innate T cells. Int J Mol Sci. (2023) 24:4084. doi: 10.3390/ijms24044084
66. Li Y-R, Dunn ZS, Zhou Y, Lee D, Yang L. Development of stem cell-derived immune cells for off-the-shelf cancer immunotherapies. Cells. (2021) 10:3497. doi: 10.3390/cells10123497
67. Kawaguchi K, Umeda K, Hiejima E, Iwai A, Mikami M, Nodomi S, et al. Influence of post-transplant mucosal-associated invariant T cell recovery on the development of acute graft-versus-host disease in allogeneic bone marrow transplantation. Int J Hematol. (2018) 108:66–75. doi: 10.1007/s12185-018-2442-2
68. Mengge G, Hong Y, Sun Y, Kong J, Yan C, Wang Z, et al. The low number of mucosal-associated invariant T cells in the graft was associated with occurrence of gut graft-versus-host disease. Blood. (2019) 134:2001. doi: 10.1182/blood-2019-127722
69. Li Y-R, Zhu Y, Fang Y, Lyu Z, Yang L. Emerging trends in clinical allogeneic CAR cell therapy. Med (New York NY). (2025) 6:100677. doi: 10.1016/j.medj.2025.100677
70. Chey WD, Leontiadis GI, Howden CW, Moss SF. ACG clinical guideline: Treatment of Helicobacter pylori infection. Am J Gastroenterol. (2017) 112:212–39. doi: 10.1038/ajg.2016.563
71. Bjorkman DJ, Steenblik M. Best practice recommendations for diagnosis and management of Helicobacter pylori-synthesizing the guidelines. Curr Treat Options Gastroenterol. (2017) 15:648–59. doi: 10.1007/s11938-017-0157-8
72. Graham DY. Hp-normogram (normo-graham) for assessing the outcome of H. pylori therapy: Effect of resistance, duration, and CYP2C19 genotype. Helicobacter. (2016) 21:85–90. doi: 10.1111/hel.12287
73. Malfertheiner P, Megraud F, Rokkas T, Gisbert JP, Liou J-M, Schulz C, et al. Management of Helicobacter pylori infection: The Maastricht VI/Florence consensus report. Gut. (2022) 71:1724–1762. doi: 10.1136/gutjnl-2022-327745
74. YuY,XueJ,Lin F,Liu D, Zhang W,RuS,etal. Global primary antibiotic resistance rate of Helicobacter pylori in recent 10 years: A systematic review and meta-analysis. Helicobacter. (2024) 29:e13103. doi: 10.1111/hel.13103
75. Nyssen OP, Bordin D, Tepes B, Pérez-Aisa Á , Vaira D, Caldas M, et al. European registry on Helicobacter pylori management (Hp-EuReg): Patterns and trends in first line empirical eradication prescription and outcomes of 5 years and 21 533 patients. Gut. (2021) 70:40–54. doi: 10.1136/gutjnl-2020-321372
76. Nyssen OP, Pratesi P, Spı́nola MA, Jonaitis L, Pérez-Aı́sa Á , Vaira D, et al. Analysis of clinical phenotypes through machine learning of first-line H. pylori treatment in Europe during the period 2013-2022: Data from the European registry on H. pylori management (Hp-EuReg). Antibiot (Basel Switzerland). (2023) 12:1427. doi: 10.3390/ antibiotics12091427
77. Chey WD, Mégraud F, Laine L, López LJ, Hunt BJ, Howden CW. Vonoprazan triple and dual therapy for Helicobacter pylori infection in the United States and Europe: Randomized clinical trial. Gastroenterology. (2022) 163:608–19. doi: 10.1053/ j.gastro.2022.05.055
78. Laine L, Sharma P, MulfordDJ, Hunt B, Leifke E, SmithN, et al. Pharmacodynamics and pharmacokinetics of the potassium-competitive acid blocker vonoprazan and the proton pump inhibitor lansoprazole in US subjects. Am J Gastroenterol. (2022) 117:1158–61. doi: 10.14309/ajg.0000000000001735
79. Chey WD, Howden CW, Moss SF, Morgan DR, Greer KB, Grover S, et al. ACG clinical guideline: Treatment of Helicobacter pylori infection. Am J Gastroenterol. (2024) 119:1730–53. doi: 10.14309/ajg.0000000000002968
80. Sakurai Y, Mori Y, Okamoto H, Nishimura A, Komura E, Araki T, et al. Acid inhibitory effects of vonoprazan 20 mg compared with esomeprazole 20 mg or rabeprazole 10 mg in healthy adult male subjects–a randomised open-label cross over study. Aliment Pharmacol Ther. (2015) 42:719–30. doi: 10.1111/apt.13325
81. Contreras M, Mujica H, Garcı́a-Amado MA. Molecular tools of antibiotic resis tance for Helicobacter pylori: An overview in Latin America. Front Gastroenterol. (2024) 3. doi: 10.3389/fgstr.2024.1410816
82. Suez J, Zmora N, Zilberman-Schapira G, Mor U, Dori-Bachash M, Bashiardes S, et al. Post-antibiotic gut mucosal microbiome reconstitution is impaired by probiotics and improved by autologous FMT. Cell. (2018) 174:1406–1423.e16. doi: 10.1016/ j.cell.2018.08.047
83. Yang Z, Zhou Y, Han Z, He K, Zhang Y, Wu D, et al. The effects of probiotics supplementation on Helicobacter pylori standard treatment: An umbrella review of systematic reviews with meta-analyses. Sci Rep. (2024) 14:10069. doi: 10.1038/s41598 024-59399-4
84. Tanashat M, Abuelazm M, Abouzid M, Al-Ajlouni YA, Ramadan A, Alsalah S, et al. Efficacy of probiotics regimens for Helicobacter pylori eradication: A systematic review, pairwise, and network meta-analysis of randomized controlled trials. Clin Nutr ESPEN. (2025) 65:424–44. doi: 10.1016/j.clnesp.2024.11.016
85. Hablass FH, Lashen SA, Alsayed EA. Efficacy of lactoferrin with standard triple therapy or sequential therapy for Helicobacter pylori eradication: A randomized controlled trial. Turkish J Gastroenterol Off J Turkish Soc Gastroenterol. (2021) 32:742–9. doi: 10.5152/tjg.2021.20923
86. Imoto I, Yasuma T, D’Alessandro-Gabazza CN, Oka S, Misaki M, Horiki N, et al. Antimicrobial effects of lactoferrin against Helicobacter pylori infection. Pathog (Basel Switzerland). (2023) 12:599. doi: 10.3390/pathogens12040599
87. Zhou A, Li L, Zhao G, Min L, Liu S, Zhu S, et al. Vitamin D3 inhibits Helicobacter pylori infection by activating the VitD3/VDR-CAMP pathway in mice. Front Cell Infect Microbiol. (2020) 10:566730. doi: 10.3389/fcimb.2020.566730
88. Zhang Y, Wang C, Zhang L, Yu J, Yuan W, Li L. Vitamin D(3) eradicates Helicobacter pylori by inducing VDR-CAMP signaling. Front Microbiol. (2022) 13:1033201. doi: 10.3389/fmicb.2022.1033201
89. Nishizawa T, Nishizawa Y, Yahagi N, Kanai T, Takahashi M, Suzuki H. Effect of supplementation with rebamipide for Helicobacter pylori eradication therapy: A systematic review and meta-analysis. J Gastroenterol Hepatol. (2014) 29:20–4. doi: 10.1111/jgh.12769
90. Andreev DN, Maev IV, Dicheva DT. Efficiency of the inclusion of rebamipide in the eradication therapy for Helicobacter pylori infection: Meta-analysis of randomized controlled studies. J Clin Med. (2019) 8:1498. doi: 10.3390/jcm8091498
91. Gong J, Wang Q, Chen X, Lu J. Helicobacter pylori vaccine: Mechanism of pathogenesis, immune evasion and analysis of vaccine types. Vaccines. (2025) 13:526. doi: 10.3390/vaccines13050526
92. Zeng M, Mao X-H, Li J-X, Tong W-D, Wang B, Zhang Y-J, et al. Efficacy, safety, and immunogenicity of an oral recombinant Helicobacter pylori vaccine in children in China: A randomised, double-blind, placebo-controlled, phase 3 trial. Lancet (London England). (2015) 386:1457–64. doi: 10.1016/S0140-6736(15)60310-5
93. Talebi Bezmin Abadi A, Lee YY. Chinese Helicobacter pylori vaccine: Solution for an old challenge? World J Gastrointest Pharmacol Ther. (2016) 7:412–5. doi: 10.4292/ wjgpt.v7.i3.412
94. Hasanzadeh Haghighi F, Menbari S, Mohammadzadeh R, Pishdadian A, Farsiani H. Developing a potent vaccine against Helicobacter pylori: Critical considerations and challenges. Expert Rev Mol Med. (2024) 27:e12. doi: 10.1017/erm.2024.19
95. Zhang H, Liu Z, Li Y, Tao Z, Shen L, Shang Y, et al. Adjuvants for Helicobacter pylori vaccines: Outer membrane vesicles provide an alternative strategy. Virulence. (2024) 15:2425773. doi: 10.1080/21505594.2024.2425773
96. Lavelle EC, Ward RW. Mucosal vaccines- fortifying the frontiers. Nat Rev Immunol. (2022) 22:236–50. doi: 10.1038/s41577-021-00583-2
97. Codolo G, Coletta S, D’Elios MM, de Bernard M. HP-NAP of Helicobacter pylori: The power of the immunomodulation. Front Immunol. (2022) 13:944139. doi: 10.3389/ fimmu.2022.944139
98. Ruenraroengsak P, Cook JM, Florence AT. Nanosystem drug targeting: Facing up to complex realities. J Control Release Off J Control Release Soc. (2010) 141:265–76. doi: 10.1016/j.jconrel.2009.10.032
99. Jebali A, Esmaeilzadeh A, Esmaeilzadeh MK, Shabani S. Immunoinformatics design and synthesis of a multi-epitope vaccine against Helicobacter pylori based on lipid nanoparticles. Sci Rep. (2024) 14:17910. doi: 10.1038/s41598-024-68947-x
100. Ni X, Liu Y, Sun M, Jiang Y, Wang Y, Ke D, et al. Oral live-carrier vaccine of recombinant Lactococcus lactis inducing prophylactic protective immunity against Helicobacter pylori infection. Probiotics Antimicrob Proteins. (2024) 17:4111–4123. doi: 10.1007/s12602-024-10360-x
101. Zhang Z, Cui M, Ji X, Su G, Zhang Y-X, Du L. Candidate antigens and the development of Helicobacter pylori vaccines. Helicobacter. (2024) 29:e13128. doi: 10.1111/hel.13128
102. Liu M, ZhongY,ChenJ,LiuY,TangC,WangX,etal.Oralimmunization of mice with a multivalent therapeutic subunit vaccine protects against Helicobacter pylori infection. Vaccine. (2020) 38:3031–41. doi: 10.1016/j.vaccine.2020.02.036
103. Friedrich V, Gerhard M. Vaccination against Helicobacter pylori- an approach for cancer prevention? Mol Aspects Med. (2023) 92:101183. doi: 10.1016/ j.mam.2023.101183
104. Michetti P, Kreiss C, Kotloff KL, Porta N, Blanco JL, Bachmann D, et al. Oral immunization with urease and Escherichia coli heat-labile enterotoxin is safe and immunogenic in Helicobacter pylori-infected adults. Gastroenterology. (1999) 116:804 12. doi: 10.1016/s0016-5085(99)70063-6
105. Sutton P, Boag JM. Status of vaccine research and development for Helicobacter pylori. Vaccine. (2019) 37:7295–9. doi: 10.1016/j.vaccine.2018.01.001
106. Clements JD, Norton EB. The mucosal vaccine adjuvant LT(R192G/L211A) or dmLT. mSphere. (2018) 3:e00215-18. doi: 10.1128/mSphere.00215-18
107. Moayyedi P, Lacy BE, Andrews CN, Enns RA, Howden CW, Vakil N. ACG and CAG clinical guideline: Management of dyspepsia. Am J Gastroenterol. (2017) 112:988 1013. doi: 10.1038/ajg.2017.154
108. Zagari RM, Dajti E, Cominardi A, Frazzoni L, Fuccio L, Eusebi LH, et al. Standard bismuth quadruple therapy versus concomitant therapy for the first-line treatment of Helicobacter pylori infection: A systematic review and meta-analysis of randomized controlled trials. J Clin Med. (2023) 12:3258. doi: 10.3390/jcm12093258
109. Losurdo G, Borraccino AV, Aloisio A, Russo F, Riezzo G, Galeano G, et al. Concomitant and bismuth quadruple therapy for Helicobacter pylori eradication in southern Italy: Preliminary data from a randomized clinical trial. Antibiot (Basel Switzerland). (2024) 13:348. doi: 10.3390/antibiotics13040348
110. Bland MV, Ismail S, Heinemann JA, Keenan JI. The action of bismuth against Helicobacter pylori mimics but is not caused by intracellular iron deprivation. Antimicrob Agents Chemother. (2004) 48:1983–8. doi: 10.1128/AAC.48.6.1983 1988.2004
111. Woo J, Bang CS, Lee JJ, Ahn JY, Kim JM, Jung H-Y, et al. In vitro susceptibility and synergistic effect of bismuth against Helicobacter pylori. Antibiot (Basel Switzerland). (2024) 13:1004. doi: 10.3390/antibiotics13111004
112. Shirley M. Vonoprazan: a review in Helicobacter pylori infection. Drugs. (2024) 84:319–27. doi: 10.1007/s40265-023-01991-5
113. Huang X-P, Liu Y-J, Lin S-W, Shao Y-F, Qiu F, Qiu Q-W, et al. Vonoprazan amoxicillin dual therapy for Helicobacter pylori eradication in Chinese population: A prospective, multicenter, randomized, two-stage study. World J Gastroenterol. (2024) 30:3304–13. doi: 10.3748/wjg.v30.i27.3304
114. Zhang J-Y, Chen J-H, Huang Y-L, Li J, Xu D, Xu Z, et al. Fourteen-day vonoprazan-amoxicillin dual therapy versus 14-day bismuth-based quadruple therapy for Helicobacter pylori treatment: a randomized clinical trial. Therap Adv Gastroenterol. (2025) 18:17562848251354868. doi: 10.1177/17562848251354868
115. Binmaeil H, Hanafiah A, Mohamed Rose I, Raja Ali RA. Development and validation of multiplex quantitative PCR assay for detection of Helicobacter pylori and mutations conferring resistance to clarithromycin and levofloxacin in gastric biopsy. Infect Drug Resist. (2021) 14:4129–45. doi: 10.2147/IDR.S325056
116. Nyssen OP,Espada M,Gisbert JP. Empirical vs. susceptibility-guided treatment of Helicobacter pylori infection: A systematic review and meta-analysis. Front Microbiol. (2022) 13:913436. doi: 10.3389/fmicb.2022.913436
117. Ouyang Y, Zhang W, He C, Zhu Y, Lu N, Hu Y. Susceptibility-guided therapy vs. bismuth-containing quadruple therapy as the first-line treatment for Helicobacter pylori infection: A systematic review and meta-analysis. Front Med. (2022) 9:844915. doi: 10.3389/fmed.2022.844915
118. Mommersteeg MC, Nieuwenburg SV, Wolters LMM, Roovers BHCM, van Vuuren HAJ, Verhaar AP, et al. The use of non-invasive stool tests for verification of Helicobacter pylori eradication and clarithromycin resistance. United Eur Gastroenterol J. (2023) 11:894–903. doi: 10.1002/ueg2.12473
119. Fontes LES, Martimbianco ALC, Zanin C, Riera R. N-acetylcysteine as an adjuvant therapy for Helicobacter pylori eradication. Cochrane Database Syst Rev. (2019) 2:CD012357. doi: 10.1002/14651858.CD012357.pub2
120. Biswas DP, TkDS. Theefficacy of adjuvant N acetyl cysteine for the eradication of H pylori infections: A systematic review and meta-analysis of randomized clinical trials. Clin Res Hepatol Gastroenterol. (2022) 46:101832. doi: 10.1016/j.clinre.2021.101832
121. Tsubosaka A, Komura D, Kakiuchi M, Katoh H, Onoyama T, Yamamoto A, et al. Stomach encyclopedia: Combined single-cell and spatial transcriptomics reveal cell diversity and homeostatic regulation of human stomach. Cell Rep. (2023) 42:113236. doi: 10.1016/j.celrep.2023.113236
122. Li N, Chen S, Xu X, Wang H, Zheng P, Fei X, et al. Single-cell transcriptomic profiling uncovers cellular complexity and microenvironment in gastric tumorigenesis associated with Helicobacter pylori. J Adv Res. (2025) 74:471–91. doi: 10.1016/ j.jare.2024.10.012
123. Hu W, Chen ZM, Wang Y, Yang C, Wu ZY, You LJ, et al. Single-cell RNA sequencing dissects the immunosuppressive signatures in Helicobacter pylori-infected human gastric ecosystem. Nat Commun. (2025) 16:3903. doi: 10.1038/s41467-025 59339-4
124. Sorini C, Tripathi KP, Wu S, Higdon SM, Wang J, Cheng L, et al. Metagenomic and single-cell RNA-Seq survey of the Helicobacter pylori-infected stomach in asymptomatic individuals. JCI Insight. (2023) 8:e161042. doi: 10.1172/jci.insight.161042
125. Hofer M, KimY,Broguiere N, Gorostidi F, Klein JA, Amieva MR, et al. Accessible homeostatic gastric organoids reveal secondary cell type-specific host-pathogen inter actions in Helicobacter pylori infections. Nat Commun. (2025) 16:2767. doi: 10.1038/ s41467-025-57131-y
126. IdowuS, Bertrand PP, Walduck AK. Gastric organoids: Advancing the study of H. pylori pathogenesis and inflammation. Helicobacter. (2022) 27:e12891. doi: 10.1111/ hel.12891
127. Pang M-J, Burclaff JR, Jin R, Adkins-Threats M, Osaki LH, Han Y, et al. Gastric organoids: Progress and remaining challenges. Cell Mol Gastroenterol Hepatol. (2022) 13:19–33. doi: 10.1016/j.jcmgh.2021.09.005
128. Kulicke CA, Swarbrick GM, Ladd NA, Cansler M, Null M, Worley A, et al. Delivery of loaded MR1 monomer results in efficient ligand exchange to host MR1 and subsequent MR1T cell activation. Commun Biol. (2024) 7:228. doi: 10.1038/s42003 024-05912-4
129. Huang RJ, Wichmann IA, Su A, Sathe A, Shum MV, Grimes SM, et al. A spatial transcriptomic signature of 26 genes resolved at single-cell resolution characterizes high-risk gastric cancer precursors. NPJ Precis Oncol. (2025) 9:52. doi: 10.1038/s41698 025-00816-w


Li YR, Chen Y, Zhu Y, Shen X, Yang L.
Front Immunol. 2026 Jul 28;17:1727910. doi: 10.3389/fimmu.2026.1727910.
Introduction
헬리코박터 파일로리(Helicobacter pylori, H. pylori)는 전 세계적으로 가장 흔한 세균성 병원체 중 하나로, 사람에게 만성 감염을 일으키며, 2015년부터 2022년까지 전 세계 성인의 감염 유병률은 43.9%로 추정되었다[1,2]. 감염은 일반적으로 소아기에 획득되며, 대부분의 감염자는 무증상이지만 H. pylori는 만성 위염과 소화성 궤양의 주요 원인이고, 위선암과 점막연관 림프조직(mucosa-associated lymphoid tissue, MALT) 림프종의 중요한 위험인자이다[3–6]. 감염의 위험인자로는 낮은 사회경제적 수준, 열악한 위생 환경 및 특정 민족적 배경 등이 있다. H. pylori를 성공적으로 제균하면 만성 위염과 소화성 궤양이 호전되고, 아스피린 복용자의 궤양 출혈 위험이 감소하며, 위암 발생률도 유의하게 낮아지는 것으로 확인되었다. 이러한 결과는 효과적인 H. pylori 관리가 임상적으로 매우 중요함을 보여준다[7–9].
임상적 증상 외에도 H. pylori는 위점막 면역에 광범위한 영향을 미친다. 감염은 면역세포의 유입과 전염증성 사이토카인의 분비를 포함한 강력한 선천면역 및 적응면역 반응을 유발한다. 이러한 면역반응에도 불구하고 세균은 흔히 지속적으로 생존하며, 이로 인해 만성 염증이 발생하여 위점막이 손상되고 궤양, 위선암 및 림프종의 위험이 증가한다[10–14]. 감염의 지속성은 H. pylori가 면역 감시를 회피하여 숙주의 위 내에 장기간 생존할 수 있는 서식처를 구축하는 능력이 있음을 보여준다.
H. pylori는 가혹한 위 내 환경에서도 지속적으로 집락화하고 질환의 병태생리에 기여할 수 있도록 다양한 병독성 기전을 진화시켜 왔다. 산성 환경인 위에서의 생존은 주로 요소분해효소(urease)에 의해 가능해진다. 요소분해효소는 요소를 가수분해하여 암모니아와 이산화탄소를 생성함으로써 세균 주변에 생존하기에 더욱 유리한 국소 미세환경을 조성한다[10–14]. 편모에 의한 운동성과 주화성(chemotaxis)은 세균이 위 점액층을 통과하도록 하며, 혈액형 항원 결합 부착소(blood group antigen-binding adhesin, BabA)와 시알산 결합 부착소(sialic acid-binding adhesin, SabA)를 포함한 부착인자는 위상피세포에 안정적으로 부착하도록 한다.
또한 H. pylori는 뮤신분해효소 활성을 지닌 효소를 생성하여 위 점액의 당단백질을 분해한다. 이는 세균이 점액층을 통과하는 것을 촉진하고 상피 표면에 더욱 쉽게 접근할 수 있도록 한다. 이러한 과정은 세균과 위상피 사이의 긴밀한 상호작용을 가능하게 함으로써 안정적인 집락 형성을 촉진하고 감염의 지속에 기여한다[10–14]. 세포독소 연관 유전자 A(cytotoxin-associated gene A, CagA)와 공포화 세포독소 A(vacuolating cytotoxin A, VacA) 등의 주요 병독성 인자는 상피 손상을 더욱 촉진하고 숙주의 신호전달 경로를 교란하며 세균의 장기적인 생존을 가능하게 한다. 이러한 병독성 결정인자는 만성 집락 형성의 기반을 마련하고 이후 H. pylori와 숙주 면역계 사이에서 일어나는 상호작용의 양상을 형성한다.
H. pylori와 숙주 면역계의 상호작용에는 상피세포, 대식세포 및 수지상세포(dendritic cell, DC)와 같은 선천면역세포, 그리고 T림프구와 B림프구를 포함한 적응면역 구성요소 사이의 복잡한 상호 소통이 관여한다[10,15–17]. 지질다당류(lipopolysaccharide, LPS)와 같은 세균 성분은 상피세포의 Toll 유사 수용체 4(Toll-like receptor 4, TLR4)를 활성화하여 선천면역 신호전달을 개시한다[18,19]. 그 결과 발생하는 면역세포의 유입과 인터루킨-1(interleukin-1, IL-1), IL-6 및 IL-8을 포함한 전염증성 사이토카인의 생성은 염증을 증폭시키고 조직 재형성에 기여한다. 적응면역 반응은 림프소포의 형성을 유도하고 체액성 면역과 세포매개성 면역을 모두 발생시키지만, H. pylori는 이러한 면역기전을 빈번하게 교란함으로써 세균이 제거되지 않도록 한다[17,20,21].
H. pylori는 감염의 지속을 가능하게 하는 다양한 면역회피 전략을 사용한다[16,22,23]. 이 세균은 CagA와 같은 효과인자를 주입하는 제4형 분비체계(type IV secretion system)를 통해 위상피세포를 직접 손상시키고, 세포자멸사를 유도하여 위점막 장벽의 기능을 저해할 수 있다. 또한 H. pylori는 면역반응을 조절하는 열충격단백질(heat shock protein, HSP)의 발현을 감소시키는 것을 비롯한 다양한 기전을 통해 숙주의 면역반응을 억제한다[16,22,23]. 이러한 면역회피 전략은 만성적인 집락 형성과 지속적인 염증을 가능하게 하며, H. pylori 관련 질환의 기전적 근거를 제공한다. 또한 효과적인 치료법을 개발하기 위해 위점막 면역반응을 이해하는 것이 중요함을 강조한다.
본 종설에서는 점막연관 불변 T세포(mucosal-associated invariant T cell, MAIT 세포)에 중점을 두고, 점막 면역과 H. pylori 사이의 복잡한 상호작용을 살펴보며, MAIT 세포의 고유한 기능적 특성과 Th1/Th17 이중 반응을 조명한다[24–26]. 또한 위 내 면역환경을 형성하고 세균의 지속 또는 제거에 영향을 미치는 Th1 세포, Th17 세포 및 조절 T세포(regulatory T cell, Treg 세포) 사이의 균형을 논의한다.
이와 함께 항생제 치료와 항생제 내성으로 인한 문제, 면역조절 접근법 및 점막 면역을 표적으로 하는 백신 개발을 포함한 치료 전략을 비판적으로 고찰하고, 새롭게 부상하는 MAIT 세포 기반 중재법을 강조한다. 마지막으로 단일세포 RNA 염기서열분석(single-cell RNA sequencing)과 공간전사체학(spatial transcriptomics) 등의 첨단 기술을 살펴보고, 면역 이질성이 개인맞춤형 접근법에 미치는 영향을 고찰한다. 아울러 향후 연구의 방향을 제시할 수 있도록 현재의 지식 공백과 핵심 연구 질문을 제시한다.
Mucosal immune responses in H. pylori infection
위상피는 H. pylori를 포함하여 섭취를 통해 유입되는 병원체에 대한 일차 방어선 역할 (first line of defense)을 하는 특수한 점막 장벽을 형성한다. 단일 층의 상피세포로 구성된 위상피는 조직의 완전성을 유지하고 위 내강과 그 아래에 위치한 면역 구획 사이의 신호 교환을 조절한다[27,28]. 이러한 장벽은 보호 점액층에 의해 더욱 강화되며, 점액층은 미생물을 포획하고 제거를 촉진함으로써 물리적·생화학적 방어막 역할을 한다. 또한 상피세포는 디펜신(defensin)과 카텔리시딘(cathelicidin)을 포함한 항균 펩타이드를 분비하며, 이들은 직접적인 살균 활성을 나타내는 동시에 국소 면역반응을 조절한다[29].
그러나 H. pylori는 이러한 장벽과 긴밀하게 상호작용하기 위한 전략을 진화시켜 왔다. 세균은 상피세포에 부착하고 제4형 분비체계를 통해 CagA와 같은 병독성 인자를 상피세포 내부로 전달한다. 이러한 상호작용은 상피의 완전성을 손상시키고 세포 신호전달 경로를 교란하며 전염증성 반응을 촉진한다. 위상피세포는 패턴인식수용체(pattern recognition receptor)를 통해 지질다당류(lipopolysaccharide, LPS)와 편모 단백질(flagellin) 등의 세균 성분을 감지한다. 이를 통해 면역세포를 유입시키고 활성화하는 선천면역 반응을 개시함으로써 숙주 방어와 세균의 지속적인 생존이 맞닿는 핵심적인 경계면을 형성한다.
위점막 장벽이 손상되면 H. pylori는 감염의 경과를 결정하는 강력한 선천면역 반응을 유도한다. Toll 유사 수용체(Toll-like receptor, TLR)와 NOD 유사 수용체(NOD-like receptor, NLR)를 포함한 패턴인식수용체가 세균 리간드를 인식하면 NF-κB 신호전달이 활성화된다. 이에 따라 IL-1β, IL-6, IL-8 및 종양괴사인자-α(tumor necrosis factor-α, TNF-α) 등의 전염증성 사이토카인과 IL-8 등의 케모카인이 생성되어 호중구와 단핵구의 유입을 조절한다. 호중구는 세균을 억제하는 데 기여하지만, 호중구에서 방출되는 활성산소종과 단백질분해효소는 주변 조직에도 부수적인 손상을 일으킨다[15,30].
대식세포와 수지상세포는 주요 포식세포이자 항원제시세포로 기능하며 염증 매개물질을 생성한다. 그러나 H. pylori는 이들 세포의 활성화 상태를 조절할 수 있다. 예를 들어 대식세포가 항염증성 표현형을 나타내도록 유도함으로써 세균의 지속적인 생존을 촉진할 수 있다. 자연살해세포(natural killer cell, NK 세포)와 감마-델타 T세포(γδ T세포) 등의 선천림프구도 활성화되어 감염 초기에 인터페론-γ(interferon-γ, IFN-γ)와 IL-17의 생성에 기여한다[17]. 이처럼 다양한 선천면역 방어기전에도 불구하고 H. pylori는 선천면역 신호전달 경로를 교란하여 흔히 만성 감염을 확립한다. 이는 H. pylori가 장기적인 집락 형성을 위해 숙주의 면역체계를 이용할 수 있음을 보여준다.
적응면역 역시 숙주와 병원체 사이의 상호작용을 형성하지만, H. pylori를 완전히 제거하는 멸균 면역(sterilizing immunity)을 획득하는 경우는 드물다. H. pylori 감염에서는 CD4+ 도움 T세포 아형, 특히 Th1 세포와 Th17 세포가 활성화되는 것이 특징이다. 이들 세포는 각각 IFN-γ와 IL-17을 생성하여 대식세포 활성화, 호중구 유입 및 지속적인 점막 염증을 유도한다[31]. 이와 동시에 조절 T세포(regulatory T cell, Treg 세포)가 증가하여 IL-10과 전환성장인자-β(transforming growth factor-β, TGF-β)를 분비하고 효과기 면역반응을 억제함으로써 면역관용과 세균의 지속적인 생존을 촉진한다[32].
Th1 세포, Th17 세포 및 Treg 세포 반응 사이의 균형은 숙주 면역반응이 감염에 대한 방어에 유리하게 작용할지, 아니면 만성 위염과 위암으로의 진행을 촉진할지를 결정하는 핵심 요인이다. 강력한 적응면역 활성화에도 불구하고 H. pylori 감염이 지속된다는 사실은 이 병원체가 정교한 면역회피 전략을 갖추고 있음을 보여주며, T세포의 조절과 기능을 표적으로 하는 잠재적인 치료 가능성을 시사한다.
Human MAIT cells and H. pylori infection
점막연관 불변 T세포(mucosal-associated invariant T cell, MAIT 세포)는 최근 선천면역과 적응면역의 경계에서 중요한 역할을 하는 세포로 주목받고 있으며, 특히 점막 조직에 풍부하게 존재한다[24,33,34]. 이들 세포는 다형성이 없는 MR1 분자에 의해 제시되는 미생물 유래 리보플라빈 대사산물을 인식하고 Th1 및 Th17과 유사한 효과기 기능을 모두 나타낸다. MAIT 세포는 IFN-γ, TNF-α 및 IL-17A와 같은 사이토카인을 생성함으로써 항미생물 방어에 기여하는 동시에 국소 염증반응을 증폭시킨다[33,35–38].
점막 장벽에 풍부하게 분포하는 MAIT 세포는 세균 및 바이러스 감염에 신속하게 반응하는 면역세포로 기능한다. MAIT 세포는 직접적인 항미생물 활성뿐 아니라 다른 면역세포 집단의 유입을 촉진하고 B세포 반응을 강화할 수 있어 체액성 면역과 백신의 효과를 뒷받침한다[39–42]. 또한 숙주 방어 외에도 조직 항상성을 유지하고 상처 치유를 촉진하는 역할을 한다. 그러나 MAIT 세포의 강력한 효과기 기능은 면역반응이 제대로 조절되지 않는 상황에서 면역병리에도 기여할 수 있다[43–46]. 따라서 MAIT 세포는 다양한 질환에서 방어적 과정과 병원성 과정 모두에 관여하는 면역학적 양날의 검이라 할 수 있다.
MAIT 세포는 H. pylori 감염에 대한 숙주의 면역반응에서 핵심적인 역할을 하며, 방어적 기능과 병원성 기능을 모두 나타낸다. H. pylori는 리보플라빈 합성 경로를 보유하고 있어 MAIT 세포의 T세포수용체(T-cell receptor, TCR)가 인식하는 리간드를 생성할 수 있다. 활성화된 MAIT 세포는 IFN-γ와 TNF-α 등의 전염증성 사이토카인을 분비하여 만성 위염의 특징적인 국소 염증을 촉진하고 추가적인 면역 효과기 세포의 유입을 유도한다[47](Figure 1).
FIGURE 1 Schematic illustration of the dual protective and pathogenic roles of MAIT cells in chronic H. pylori infection.
Gastric macrophages present riboflavin metabolites via MR1 to tissue-resident MAIT cells. Upon activation, MAIT cells polarize toward Th1-like (MAIT1) responses, producing IFN-g and TNF a that drive inflammation and tissue damage, or Th17-like (MAIT17) responses, producing IL-17A, IL-21, and IL-22 that promote epithelial defense and antimicrobial activity. Circulating MAIT cells are reduced in peripheral blood, whereas gastric tissue–resident MAIT cells are enriched, underscoring their compartmentalized role in disease progression.
위점막의 MAIT 세포는 CD69와 CD103의 발현을 특징으로 하는 조직상주(tissue-resident phenotype) 표현형을 나타내며, 이는 국소 병원체에 신속하게 반응할 수 있는 준비 상태에 있음을 의미한다[47]. 기능 연구에 따르면 위점막과 말초혈액의 MAIT 세포는 모두 H. pylori를 인식할 수 있다. 구체적으로 CD8+ MAIT 세포와 CD4−CD8− 이중음성(double-negative) MAIT 세포 아형은 H. pylori에 감염된 대식세포에 반응하여 MR1 제한적인 방식으로 IFN-γ, TNF-α 및 IL-17A 등의 사이토카인을 생성하고 세포독성 활성을 나타낸다[47].
특히 MAIT 세포의 빈도는 전신과 점막 구획 사이에서 서로 다르게 나타난다. H. pylori 양성인 사람은 비감염 대조군보다 말초혈액 내 MAIT 세포 수가 유의하게 감소하지만, 위점막 내 MAIT 세포의 빈도는 비교적 일정하게 유지된다. 또한 위점막 MAIT 세포의 대부분(>80%)이 조직상주 표지자를 발현하는 반면, 말초혈액 MAIT 세포에서 이러한 표지자를 발현하는 비율은 3% 미만이다. 이는 MAIT 세포가 점막 면역반응에 신속하게 대응할 수 있도록 전략적으로 배치되어 있음을 보여준다[47].
말초혈액에서 MAIT 세포가 감소하는 현상은 H. pylori 감염 중 염증이 발생한 위점막으로 이들 세포가 선택적으로 이동하거나, 활성화로 인해 세포 빈도가 변화한 결과일 수 있다. 말초혈액을 순환하는 MAIT 세포와 조직상주 MAIT 세포 사이의 발생학적·이동학적 관계는 아직 완전히 밝혀지지 않았다. 그러나 현재까지의 근거에 따르면 두 세포 집단은 각각의 구획에 특이적인 표현형과 기능을 나타내며, 이들이 함께 점막 면역감시와 숙주 방어에 기여하는 것으로 보인다.
또 다른 연구에서는 H. pylori 연관 위염에서 T세포 수용체인 OX40(CD134)과 그 리간드인 OX40L(CD252)이 관여하는 보조자극 경로인 OX40/OX40L 신호축이 MAIT 세포 매개 점막 면역을 조절하는 핵심 인자로 제시되었다[48]. 건강한 대조군과 비교하여 감염 환자의 점막 MAIT 세포에서는 OX40 발현이 증가하고 수지상세포에서는 OX40L 발현 수준이 높게 나타났다. 이는 위 미세환경 내에서 보조자극 상호작용이 강화되어 있음을 시사한다[48].
이 경로의 활성화는 MAIT 세포의 증식을 촉진하고 상당한 양의 IL-9 생성을 유도하여 고도로 활성화된 표현형을 형성한다. 특히 MAIT 세포의 IL-9 분비는 위 염증 표지자와 양의 상관관계를 보여, IL-9을 생성하는 MAIT 세포가 질환의 병태생리에 기여할 가능성을 시사한다[48]. 이러한 결과는 OX40/OX40L 신호축이 MAIT 세포에 의해 유발되는 염증의 핵심 매개체임을 보여주며, H. pylori 유발 위염의 잠재적인 치료 표적으로 활용될 가능성을 제시한다.
종합하면, 이러한 연구 결과는 H. pylori 감염에서 MAIT 세포 반응이 면역 구획에 따라 서로 다르게 나타난다는 점을 강조하며, 전신 면역과 위점막 면역 사이에 존재하는 차이를 보여준다(Figure 1). 또한 말초혈액과 조직상주 구획에 존재하는 MAIT 세포의 기능적 특수성에 관한 중요한 근거를 제공하며, MAIT 세포가 숙주 방어를 매개하는 동시에 만성 위 염증에도 기여하는 이중적인 역할을 한다는 점을 보여준다.
Therapeutic insights and vaccination strategies targeting mucosal immunity
Human MAIT cell-based immunotherapy
MAIT 세포는 고유한 생물학적 특성, 조직상주성 및 리보플라빈 유래 항원에 대한 반응성으로 인해 새로운 면역치료 후보로서 점차 주목받고 있다. 기존 T세포와 달리 MAIT 세포는 사람 집단에서 거의 단형성을 보이며 매우 잘 보존된 MR1 분자에 의해 제한된다. 이러한 특성은 기존 T세포 기반 접근법에 내재된 HLA 제한성과 개인 간 변이라는 한계를 극복할 수 있는 ‘범용’ MAIT 세포 기반 치료법을 개발하는 데 강력한 근거를 제공한다[33,49–51].
면역치료에 MAIT 세포를 활용하기 위한 유망한 전략 중 하나는 합성 항원 전달체계를 이용하여 생체 내에서 MAIT 세포를 선택적으로 활성화하는 것이다. MR1에 강력하게 결합하는 리간드인 5-(2-옥소프로필리덴아미노)-6-D-리비틸아미노우라실[5-(2-oxopropylideneamino)-6-D-ribitylaminouracil, 5-OP-RU]은 강력한 T세포수용체 매개 MAIT 세포 활성화를 유도할 수 있는 리보플라빈 대사산물 유도체이다[52–54]. 5-OP-RU를 지질나노입자(lipid nanoparticle, LNP)에 봉입하면 항원제시세포로 효율적으로 전달할 수 있고, 불안정한 리간드를 빠른 분해로부터 보호하며, 시간적·공간적으로 조절된 방출이 가능해진다.
전임상 연구에서는 5-OP-RU가 MAIT 세포의 강력한 증식과 효과기 기능 활성화를 유도하여 IFN-γ, TNF-α 및 IL-17 등의 사이토카인 생성을 증가시키고, 항미생물 및 항종양 반응을 향상시키는 것으로 나타났다[25,54,55]. 서방형 제제는 국소 생체이용률을 더욱 높이고 점막이나 종양 부위에서 MAIT 세포의 활성화를 지속시키는 데 도움이 될 수 있다. 이러한 접근법은 단독요법으로 사용하거나 암 백신, 면역관문억제제 또는 기존 치료법과 병용함으로써 치료 효과를 높일 수 있으며, 생체 내 국소 환경에서 MAIT 세포 반응을 약리학적으로 조절하는 방법을 제공한다.
전신 투여 외에도 국소 전달 플랫폼은 전신 면역 활성화를 최소화하면서 위점막 내 항원 가용성을 높임으로써 MAIT 세포 기반 면역치료의 효과를 더욱 향상시킬 수 있다. 나노입자, 점막부착형 제제 및 미세침 기반 전달체계는 5-OP-RU와 같은 MR1 리간드를 MAIT17 분화를 촉진하는 면역조절 사이토카인과 함께 국소적으로 지속 방출할 수 있는 잠재력을 지닌다(Figure 2).
MAIT 세포를 MAIT17 유사 표현형으로 재프로그래밍하면 상피 장벽 기능을 강화하고 항균 펩타이드 생성을 증가시키며 호중구의 유입을 촉진함으로써 H. pylori에 대한 점막 방어 능력을 향상시킬 수 있다(Figure 2). 그러나 이러한 접근법은 아직 대부분 전임상 단계에 머물러 있다. 임상 적용에 앞서 위점막으로의 효율적인 전달, 표현형의 안정성 유지, 의도하지 않은 면역 활성화 가능성, 그리고 방어 면역과 과도한 염증 사이의 균형 등 중요한 과제를 해결해야 한다.
FIGURE 2 Strategies to reprogram and engineer MAIT cells for immunotherapy against H.pylori infection and its associated gastric diseases.
(A) Chronic H. pylori colonization–induced mucus layer degradation by bacterial mucinase, pepsin, and gastric acid leads to epithelial injury and predisposing to gastric malignancy and autoimmunity.
(B) Local delivery of 5-OP-RU and Th17-polarizing cytokines via nanoparticles, mucoadhesive patches, or microneedle patches to reprogram MAIT1 cells toward MAIT17 responses that enhance epithelial defense and antimicrobial activity.
(C) LNP mediated CRISPR transcriptional modulation silencing T-bet and upregulating RORgt in order to drive MAIT 17 polarization, neutrophil recruitment, and enhanced H.pylori clearance.
(D) In vivo chimeric antigen receptor (CAR) engineering of endogenous MAIT cells via lipid nanoparticle (LNP) delivery of CAR constructs, enabling direct targeting of H. pylori–driven pathology.
(E) Ex vivo CAR-MAIT engineering from peripheral blood mononuclear cell (PBMC)-, hematopoietic stem and progenitor cell (HSPC)-, or induced pluripotent stem cell (iPSC)-derived MAIT cells, allowing expansion, genetic modification, and adoptive transfer as an off-the-shelf therapeutic product.
또한 MAIT 세포의 유전공학적 변형은 새롭게 부상하는 연구 분야이다. 지질나노입자를 통해 전달되는 CRISPR/Cas9 체계와 합성 mRNA 구조체를 포함한 생체 내 유전자 편집 기술의 발전은 T세포의 기능적 활성을 강화하고 생존 기간을 연장하며, 키메라 항원 수용체(chimeric antigen receptor, CAR)를 발현시켜 표적 특이성을 새롭게 부여할 수 있는 가능성을 제공한다[56,57]. MAIT 세포는 점막 조직으로 선택적으로 이동하고 신속한 효과기 반응을 나타내며, Th1 및 Th17 유형의 사이토카인을 모두 분비할 수 있는 고유한 능력을 지닌다. 이러한 특성으로 인해 유전공학적으로 변형된 MAIT 세포는 위암, 대장암 및 간담도암과 같이 점막 환경에서 발생하는 고형암을 표적으로 하는 데 특히 적합하다[26,58–60]. 이처럼 약리학적·유전학적 전략은 차세대 암 면역치료를 위한 새롭고 활용 범위가 넓은 플랫폼으로서 MAIT 세포의 잠재력을 보여준다.
기성품 형태로 즉시 사용할 수 있는(off-the-shelf) MAIT 세포 및 CAR 유전자 조작 MAIT(CAR-MAIT) 세포 치료제의 개발은 중개 면역치료 분야에서 특히 유망한 접근법이다[58,61–64]. MAIT 세포는 건강한 공여자나 다능성 줄기세포로부터 생체 외에서 효율적으로 증식시키고 유전공학적으로 변형할 수 있어, 기능이 우수하고 표준화된 세포치료제로 제조할 수 있다[56,59,65,66]. 이러한 세포는 암, 자가면역질환, 만성 궤양, 특히 H. pylori 관련 질환을 포함한 다양한 질환의 치료에 활용될 수 있다.
예를 들어 H. pylori에 의해 유발되는 위암은 입양 MAIT 세포치료(adoptive MAIT cell therapy)의 이상적인 표적이 될 수 있다. 이 경우 유전적으로 변형하지 않은 MAIT 세포의 고유한 항미생물 및 세포독성 기능을 활용하거나, CAR 유전자 조작 MAIT 세포가 종양연관항원을 표적으로 인식하도록 방향을 전환하여 치료 효과를 높일 수 있다.
MAIT 세포 기반 치료법의 주요 장점은 다형성이 없는 MR1 분자에 의해 제한된다는 점이다. 이는 HLA 불일치로 인한 문제를 피하고 이식편대숙주병(graft-versus-host disease, GvHD)의 위험을 최소화할 수 있도록 한다[65,67,68]. 이러한 특성으로 인해 환자별로 세포치료제를 별도로 제조할 필요 없이 모든 환자에게 적용 가능한 동종유래 기성품 세포치료제를 생산할 수 있으며, 신속하고 대규모로 임상에 적용하는 것도 가능해진다.
더욱이 MAIT 세포는 본질적으로 조직, 특히 점막 부위로 이동하는 능력을 지니며, Th1 및 Th17 관련 사이토카인을 분비하고 세포독성 기능을 수행할 수 있다. 따라서 위장관 질환을 표적으로 하는 데 매우 적합한 특성을 갖는다. MAIT 세포가 방어적 역할과 병원성 역할을 모두 하는 것으로 알려진 H. pylori 관련 질환에서는 만성 위염, 소화성 궤양 및 위암 등이 잠재적인 치료 대상에 포함될 수 있다.
특히 CAR 유전자 조작 MAIT 세포는 감염 관련 암뿐만 아니라 기존 CAR-T 세포치료에 잘 반응하지 않는 고형암으로 치료 범위를 확대할 수 있다. 이는 MAIT 세포의 조직상주성과 신속한 효과기 반응을 활용한 것이다[25,69]. 또한 MAIT 세포는 이미 확립된 세포 유전공학 플랫폼과 호환될 수 있어 차세대 범용 CAR-MAIT 세포 플랫폼을 개발할 수 있는 실현 가능성을 더욱 뒷받침한다.
종합하면, 이러한 특성들은 기성품 MAIT 세포 및 CAR-MAIT 세포 치료제가 H. pylori 관련 질환과 치료하기 어려운 다른 악성종양에서 기존 CAR-T 및 CAR-NKT 세포치료를 보완하거나, 나아가 이를 능가할 가능성이 있는 혁신적인 면역치료 전략임을 시사한다.
종합하면, 지질나노입자를 통해 전달되는 5-OP-RU를 이용한 항원 특이적 활성화, 효과기 기능을 강화하기 위한 생체 내 유전공학적 변형, 그리고 범용 기성품 MAIT 또는 CAR-MAIT 세포치료제의 개발을 포함한 이러한 전략들은 H. pylori 감염과 관련 질환을 치료하기 위한 차세대 세포 면역치료제로서 MAIT 세포가 지닌 임상 적용 가능성을 보여준다(Figure 2). 이러한 접근법은 MAIT 세포가 숙주 방어와 면역병리 모두에서 이중적인 역할을 하는 것으로 알려진 만성 위염, 소화성 궤양 및 위암을 포함한 H. pylori 유발 질환에서 특히 중요한 효과를 나타낼 수 있다.
Antibiotic treatment and challenges with resistance
H. pylori 제균치료는 광범위한 항균제 내성을 극복하고 강력한 위산 억제를 확보할 수 있는 치료법을 중심으로 뚜렷하게 변화해 왔다. 2024년 미국소화기학회(American College of Gastroenterology, ACG) 진료지침은 항균제 감수성을 알 수 없는 초치료 환자에서 14일간의 최적화 비스무트 사제요법(bismuth quadruple therapy, BQT)을 우선적인 경험적 치료법으로 권고한다. 클래리스로마이신 기반 삼제요법은 마크롤라이드 감수성이 확인된 경우가 아니라면 사용하지 않아야 한다[70,71]. 레보플록사신을 포함한 치료법에도 이와 유사한 주의가 필요하다[72]. 또한 이 지침은 보노프라잔 기반 치료법과 리파부틴 삼제요법을 합리적인 대안으로 제시하며, 치료 후에는 모든 환자에서 제균 성공 여부를 확인하도록 권고한다.
유럽의 합의안도 이와 같은 방향을 제시한다. Maastricht VI/Florence 합의문은 항균제 감수성에 근거한 치료를 강조하며, 클래리스로마이신 내성률이 15%를 초과하는 지역에서는 클래리스로마이신 삼제요법을 사용하지 않도록 권고한다. 또한 일차치료와 구제치료를 결정하는 데 분자검사가 수행할 수 있는 역할을 강조한다[73]. 이러한 권고의 배경에는 일차 항균제 내성의 증가가 있다. 지역마다 상황은 다르지만, 2024년 발표된 전 세계 메타분석에서는 클래리스로마이신, 메트로니다졸 및 레보플록사신 등 흔히 사용하는 항균제에 대한 일차 내성이 상당한 수준인 것으로 나타났다. 이는 지역별 역학과 환자의 과거 항균제 사용력을 고려하여 치료법을 선택할 필요가 있음을 뒷받침한다[74].
유럽의 실제 임상 등록자료에 따르면, 진료지침에 부합하는 단일 캡슐 비스무트 사제요법을 10일간 시행하거나 클래리스로마이신·아목시실린·메트로니다졸 또는 티니다졸을 이용한 동시요법을 14일간 시행하면 치료 효과가 향상된다. 실제 임상에서 단기간의 삼제요법을 점차 사용하지 않게 되면서 전체 제균율도 증가하였다[75,76].
칼륨경쟁적 위산분비억제제(potassium-competitive acid blocker, PCAB) 기반 치료법은 불충분한 위산 억제로 인한 치료 실패를 보완한다. 미국에서는 무작위배정 임상시험 결과를 근거로 보노프라잔·아목시실린 이제요법과 보노프라잔·아목시실린·클래리스로마이신 삼제요법이 미국 식품의약국(Food and Drug Administration, FDA)의 승인을 받았다. 이러한 치료법은 위 내 pH를 더 높게 유지하며, 하루 1회 또는 2회 투여할 수 있는 치료 방식을 제공한다. 그러나 클래리스로마이신을 포함한 치료 패키지는 여전히 해당 항균제에 대한 감수성이 확인된 감염에서만 사용해야 한다[77–80].
해결해야 할 과제 중 하나는 신속한 비침습적 항균제 감수성검사의 확립이다. 배양검사가 여전히 표준검사이지만, 클래리스로마이신 내성을 예측할 수 있는 A2143G, A2142G 및 A2142C 등의 23S rRNA 돌연변이를 검출하는 대변 기반 분자검사는 환자별 맞춤치료를 더욱 신속하게 시행할 수 있도록 하며, 임상검사실에서도 점차 이용 가능해지고 있다. 합의 지침에서는 특히 배양검사 역량이 제한된 환경에서 이러한 분자검사의 역할이 확대되고 있음을 언급한다[73,81].
또한 ACG는 항균제 투여를 마친 후 최소 4주가 지난 시점에 요소호기검사, 대변항원검사 또는 조직검사를 이용하여 제균 성공 여부를 확인하도록 권고한다. 위음성 결과를 방지하기 위해 검사 전 약 2주 동안 양성자펌프억제제(proton pump inhibitor, PPI) 또는 PCAB 치료를 중단해야 한다[79].
Immunomodulatory therapies
면역조절 치료는 세균 제거를 촉진하고 염증을 줄이거나 치료 결과를 개선하기 위해 숙주의 면역반응 또는 위점막 미세환경을 변화시키는 중재를 의미한다. 이 절에서 다루는 접근법들은 서로 다른 생물학적 기전을 통해 작용하지만, 숙주 방어를 강화하거나 점막 항상성을 촉진함으로써 기존 항생제 치료를 보완한다는 공통된 목표를 지닌다. 이에 따라 프로바이오틱스는 주로 장내 미생물군과 점막 면역반응을 조절하고, 락토페린은 항미생물 및 면역조절 작용을 나타내며, 비타민 D는 항균 펩타이드의 생성을 유도하여 선천면역을 강화한다. 레바미피드는 점막 보호를 촉진하는 동시에 염증성 신호전달을 억제한다.
전통적인 항생제 치료 외에도 제균 효과를 높이고, 치료 순응도를 저해하는 항생제 관련 이상반응을 줄이며, 미생물군에 미치는 부수적인 영향을 완화할 수 있는 면역조절 접근법에 대한 관심이 증가하고 있다[73,79,82,83]. 현재 성인 진료지침은 이러한 접근법에 신중한 입장을 보인다. 2024년 미국소화기학회 진료지침은 치료 효과나 내약성을 개선하기 위해 프로바이오틱스를 일상적으로 권고할 만한 근거가 충분하지 않다고 결론지었다. 반면 Maastricht VI/Florence 합의문은 일부 프로바이오틱스 제제가 위장관 부작용을 줄이고 제균 효과를 다소 향상시킬 수 있음을 인정하면서도, 공생 미생물군의 항생제 내성 유전자 집합체(resistome)에서 내성이 선택될 가능성에 대한 우려를 함께 제기하였다[73,79]. 이러한 견해는 항균제 감수성에 근거한 항생제 치료 및 필수적인 제균 확인검사와 함께 면역조절제를 실용적이고 개별화된 방식으로 사용해야 한다는 방향을 제시한다.
여러 연구 결과는 면역조절 치료의 실현 가능성을 보여주었다. 예를 들어 최근의 여러 메타분석에서는 표준치료에 프로바이오틱스를 추가하는 것이 제균율 증가 및 이상반응 감소와 관련된 것으로 보고되었다. 그러나 그 효과의 크기는 사용한 균주, 용량 및 투여 시점에 따라 달랐다[83,84]. 메타분석 결과, Lactobacillus spp.와 Saccharomyces boulardii를 포함한 여러 미생물은 H. pylori에 직접적인 항균 작용을 하기보다는 주로 치료 관련 이상반응을 줄이고 치료 내약성을 개선하는 것으로 나타났다.
프로바이오틱스 외에도 철 결합 당단백질인 락토페린은 위 내 미세환경에서 항미생물 및 항염증 작용을 나타낸다. 보조치료로 락토페린을 기존의 삼제요법이나 순차치료에 추가한 임상시험에서는 H. pylori 제균 효과와 치료 내약성이 향상될 가능성이 제시되었다. 그러나 연구 결과가 일관되지 않아 현재의 치료 환경을 반영한 대규모 무작위배정 임상시험(randomized clinical trial, RCT)이 추가로 필요하다[85,86].
숙주 방어 펩타이드의 생성을 유도하는 것도 위 내 H. pylori 균량을 줄일 수 있는 방법이다. 이는 비타민 D3 수용체(vitamin D3 receptor, VDR)와 항균 펩타이드인 CAMP/LL-37의 발현을 증가시킴으로써 가능하다[87,88]. 경구 비타민 D3 투여와 기존 H. pylori 삼제요법을 병용하는 치료법을 평가한 임상시험이 시행되었으며, 그 결과는 아직 발표되지 않았다(NCT03142620).
치료 전략은 위점막 보호에도 초점을 맞추어 왔다. 점막보호제인 레바미피드는 위 내 프로스타글란딘 합성을 유도하고 NF-κB/IL-8 신호전달을 억제한다. 메타분석에서는 레바미피드를 이제요법에 추가하였을 때 H. pylori 제균율이 향상된 것으로 나타났지만, 삼제요법에 추가한 경우의 이점은 상대적으로 일관되지 않았다[89,90].
Vaccine development targeting mucosal immunity
현재 H. pylori에 대한 백신은 허가된 바 없지만, 점막 백신은 감염을 억제하고 항생제 사용을 줄이며 항생제 내성 발생에 대한 선택압을 완화하기 위한 우선순위가 높은 전략으로 여겨지고 있다[91]. H. pylori에 감염된 적이 없는 소아를 대상으로 3회 투여 경구 재조합 H. pylori 백신을 평가한 제3상 무작위배정 이중눈가림 위약대조 임상시험에서는 접종 후 1년째 71.8%의 예방 효과가 나타났으나, 3년째에는 55.8%로 감소하였다. 이 백신은 요소분해효소 B 소단위(urease B subunit)와 대장균(Escherichia coli, E. coli) 열불안정 장독소 B 소단위(heat-labile enterotoxin B subunit, LTB)의 융합단백질을 포함하며, 안전성과 면역원성이 확인되었다[92,93]. 이후의 종설에서도 이 연구는 소아 예방접종의 개념증명 연구로 지속적으로 인용되고 있지만, 이와 비교할 수 있는 성인 대상 백신 효능 자료가 부족하다는 점도 지적되고 있다[94].
H. pylori는 위점막에 집락을 형성하므로, 강력한 국소 및 전신 면역반응을 유도하기 위해 백신 항원을 점막 면역증강제와 함께 전달하는 방법이 흔히 사용된다. 대표적인 점막 면역증강제로는 콜레라 독소 B 소단위(cholera toxin B subunit, CTB), LTB 및 대장균 이중 돌연변이 열불안정 독소(E. coli double-mutant heat-labile toxin, dmLT) 등이 있으며, 이들은 강력한 점막 및 전신 면역반응을 유도하는 데 사용된다[95,96]. 전통적인 면역증강제 외에도 H. pylori가 생성하는 미니페리틴(miniferritin)인 호중구활성화단백질(neutrophil-activating protein, HP-NAP)이 백신 구성체에서 Th1 반응을 강화하기 위한 항원이자 면역자극제로 연구되고 있다[97,98].
백신 항원 후보에는 요소분해효소(UreA/UreB), CagA와 VacA 등의 병독성 인자, HpaA와 같은 부착인자 및 다중 에피토프 조합 등이 포함된다. 백신 플랫폼으로는 정제 단백질, DNA, 바이러스 또는 세균 벡터(예: Lactococcus 또는 Lactobacillus) 및 외막소포(outer-membrane vesicle)가 활용되고 있다[99–102]. 여러 백신 후보를 종합하면, 이미 감염된 성인을 대상으로 하는 치료 백신보다 병원체에 노출되기 전에 투여하는 예방 백신이 더 유망한 것으로 보인다. 이는 멸균적 제거를 방해하는 위점막의 면역관용과 H. pylori의 면역회피 기전 때문일 가능성이 있다[103–105].
그러나 여전히 해결해야 할 중요한 과제가 남아 있다. 소아 대상 경구 백신의 예방 효과는 시간이 지나면서 감소하였으며, H. pylori 균주의 다양성과 이 세균에 의한 면역조절은 장기적인 예방 효과를 어렵게 한다. 이는 폭넓고 지속적인 예방 효과를 유지하는 것이 중요함을 보여준다[91,93]. 또한 dmLT 및 이와 유사한 점막 면역증강제가 면역반응을 강화하지만, 대규모 소아 예방접종 사업에 적용하려면 최적의 투여량과 반응원성(reactogenicity) 양상을 확립해야 한다[106]. 예방 백신 임상시험에서는 투여 후 이상반응을 감시하고 안전성을 확인하기 위한 장기간의 추적관찰도 필요하다. 이러한 제한점들을 고려하면, 향후 백신 개발의 진전은 소아에게 적용하기에 적절한 투여 방식과 안전성의 범위 내에서 광범위하고 지속적인 예방 효과를 확보할 수 있는지에 달려 있다.
Prospects for combination strategies
현재까지의 자료에 따르면 비스무트 사제요법(bismuth quadruple therapy, BQT)은 비스무트 비포함 동시요법과 유사한 치료 효과를 나타낸다[70,107]. 일부 분석에서는 BQT가 다소 우수한 것으로 나타났는데, 이는 비스무트가 항균제 내성 감염에서도 추가적인 활성을 나타내기 때문일 가능성이 있다[108,109]. 전임상 연구에서는 비스무트염이 H. pylori의 금속 항상성을 방해하고 내성 균주에 대한 항균 활성을 강화할 수 있는 것으로 나타났다. 이는 비스무트가 항균제 내성의 영향을 완화하는 보조 약제로서 역할을 할 수 있음을 뒷받침한다[110,111].
칼륨경쟁적 위산분비억제제(potassium-competitive acid blocker, PCAB) 기반 치료법은 항균 범위를 줄이는 대신 개별 약제의 효과를 강화하는 방향으로 병용요법의 구성을 변화시키고 있다[77,112]. 보노프라잔·아목시실린 이제요법(vonoprazan-amoxicillin dual therapy, VA)은 하나의 항생제만 사용하면서도 강력한 위산 억제 효과를 제공한다. 이러한 장점을 바탕으로 적절한 환자에서는 14일간 사용할 수 있는 경험적 대체 치료법으로 진료지침에 제시되어 있다[78,107]. 일부 임상자료에서는 VA가 다른 PCAB 기반 치료법과 유사한 효과를 보이는 것으로 보고되었지만, 그 효과는 지역과 치료요법의 구성에 따라 달라지는 것으로 보인다[113,114].
두 가지 추가적인 전략을 통해 병용치료를 더욱 강화할 수 있다. 첫째, 배양검사 또는 23S rRNA와 gyrA 돌연변이를 검출하는 비침습적 대변 중합효소연쇄반응(polymerase chain reaction, PCR)을 이용한 감수성 기반 치료(susceptibility-guided therapy, SGT)는 지역 및 개별 환자의 항균제 내성 양상에 적합한 약제 조합을 선택할 수 있게 한다. 여러 임상시험과 메타분석에서 SGT는 단기간 삼제요법보다 우수한 효과를 보였으며, 항균제 내성률이 높은 환경에서는 검사가 가능할 경우 경험적 사제요법과 대등하거나 이를 능가하는 효과를 나타낼 수 있는 것으로 보고되었다[115–118].
둘째, N-아세틸시스테인(N-acetylcysteine, NAC)과 같이 생물막을 표적으로 하는 보조제는 항생제의 침투를 향상시킬 수 있다. NAC는 점액용해제로서 H. pylori 생물막의 세포외 고분자 기질을 파괴할 수 있으며, 이를 통해 항균제와 숙주 면역 방어로부터 보호받던 세균을 노출시킨다. NAC는 생물막의 구조를 불안정하게 함으로써 항생제가 세균에 더 잘 도달하도록 하고, 특히 지속성 또는 불응성 감염에서 제균 효과를 높일 수 있다[119,120]. 초기 임상시험과 메타분석에서는 일관되지 않은 결과가 보고되었지만, 표준 항생제 병용요법의 효과가 감소하는 여러 차례의 치료 실패 환자에서는 여전히 관심을 가질 만한 전략이다[119,120].
Future directions
고해상도 인체 지도화 기술은 H. pylori 감염에 대한 이해를 새롭게 정립하고 있다. 인체 위 조직에 단일세포 RNA 염기서열분석(single-cell RNA sequencing, scRNA-seq)과 공간전사체학을 함께 적용함으로써 이제 위샘 수준의 해상도로 상피세포 계통, 면역세포의 미세구역 및 사이토카인 신호회로를 규명할 수 있게 되었으며, 이를 통해 잠재적인 생체표지자와 치료 표적을 발굴할 수 있다[121]. 최근 H. pylori 관련 질환에 초점을 맞춘 단일세포 연구에서는 위염-화생-암종으로 진행하는 과정에서 나타나는 세포 상태의 전환을 더욱 상세히 규명하였다. 특히 염증성 섬유모세포, 변화된 상피세포 프로그램 및 골수계 세포의 분극이 강조되었으며, 이러한 변화는 제균치료 전후에 걸쳐 종단적으로 추적할 수 있을 것으로 보인다[122,123].
또한 메타게놈 분석과 scRNA-seq을 결합한 연구에서는 H. pylori 감염 위점막과 비감염 위점막을 비교함으로써, 조직 내 면역세포 상태를 해석하는 데 필요한 미생물군의 맥락을 함께 제시하였다. 다중오믹스 기반 환자 프로파일링은 개인별 제균치료 전략과 표적 면역조절제의 선택에 도움을 줄 수 있으며, 조직 또는 대변 생체표지자는 지속적인 감염 억제 여부를 조기에 평가할 수 있는 지표로 활용될 수 있다[121,124].
오가노이드 체계는 생리적 환경과 유사한 조건에서 숙주 표적 중재와 미생물군을 보존하는 중재를 통제된 방식으로 평가할 수 있게 한다. 최근 한 연구에서는 위 내강 측의 산성 환경을 유지하면서 H. pylori의 지속적인 집락 형성을 가능하게 하는 항상성 오가노이드-온-어-칩 플랫폼을 개발하였다. 이 플랫폼은 H. pylori가 위상피 내에서 생태적 지위를 확립하고 장기간 집락화하는 과정을 모형화할 수 있다[125]. 위 오가노이드를 이용하여 상피세포와 미생물 사이의 상호작용을 더욱 정교하게 구현하고 여기에 면역세포를 통합하면, 임상 적용에 앞서 장벽 회복, 면역증강제 및 면역치료 후보를 연구할 수 있는 실질적인 방향을 제시할 수 있다[126,127].
점막 면역에서 MAIT 세포가 수행하는 핵심적인 역할을 고려하면, H. pylori 감염에 대한 MAIT 세포 기반 치료는 유망한 미래 연구 방향이다. 사람의 위염 자료에서는 OX40/OX40L 신호축이 IL-9을 생성하는 고도로 활성화된 MAIT 세포 표현형을 유도하며, 이러한 반응이 위점막 염증과 상관관계를 보이는 것으로 나타났다[48]. 이 결과는 MAIT 세포 입양치료에서 보조자극 신호를 선택적으로 차단하는 전략을 검증할 수 있는 근거를 제시한다.
이와 함께 MR1 항원 처리 기술도 발전하고 있다. 특히 수용성 MR1 단량체를 이용하여 5-OP-RU를 효율적으로 전달하는 기술은 위 조직 내 MAIT 세포의 신호전달을 직접 시각화하고 조절할 수 있는 새로운 실험적 접근법을 제공한다[128]. 요약하면, 고해상도 인체 지도화 기술, 생리적 위 모형 및 실험적으로 조절 가능한 MAIT/MR1 생물학의 융합은 기존의 집단 수준 치료에서 벗어나 면역 정보에 기반한 조직 표적 치료로 전환할 수 있는 토대를 마련한다. 이러한 전략은 지속적인 H. pylori 제균과 이후 발생할 수 있는 위 질환의 예방을 함께 달성하는 것을 목표로 한다.
Concluding remarks
H. pylori는 위점막과 정교하게 조절된 상호작용을 통해 감염을 지속한다. 이 과정에서 상피 방어기전, 골수계 세포의 분극 및 조직상주 림프구가 무증상 보균부터 궤양과 암에 이르는 다양한 임상 경과를 결정한다. 이러한 생태계 내에서 MAIT 세포는 점막 면역이 지닌 가능성과 위험성을 동시에 보여준다. MAIT 세포는 미생물 대사산물에 신속하게 반응하지만, 위염에서는 OX40/OX40L 신호축을 통해 IL-9을 생성하는 고도로 활성화된 상태로 전환되어 병적 염증을 증폭시킬 수 있다[48,124].
임상적으로 가장 즉각적인 성과는 항균제 내성을 고려한 엄격한 진료를 통해 얻을 수 있다. 2024년 미국소화기학회(American College of Gastroenterology, ACG) 진료지침은 항균제 감수성을 알 수 없는 경우 14일간의 최적화 비스무트 사제요법을 기본적인 일차치료로 권고한다. 보노프라잔 기반 치료법과 리파부틴 삼제요법은 임상 상황에 따라 선택할 수 있는 대안이며, 치료 후에는 반드시 제균 성공 여부를 확인하도록 권고한다[70]. Maastricht VI/Florence 합의문은 검사가 가능한 경우 감수성에 근거하여 치료법을 선택할 것을 강조함으로써 이를 보완한다. 이러한 접근법은 다양한 항균제 내성 환경에서 항생제의 치료적 유용성을 보존하는 데 기여할 수 있다[73].
이제 차세대 기술은 병태생리 기전을 실제 치료로 전환하는 데 필요한 정밀한 분석 수단과 실험 플랫폼을 제공하고 있다. 인체 위 조직의 단일세포 및 공간 지도는 감염과 전암성 변화가 진행되는 과정에서 나타나는 상피세포 프로그램, 골수계 세포 상태 및 조직상주 림프구의 표현형을 규명한다[121]. 최근 연구에서는 고위험 화생성 위샘에 공간적으로 분포하는 26개 유전자 시그니처가 도출되었으며, 이는 제균치료 또는 질병 예방 임상시험에서 조기 생체표지자로 활용될 수 있다[129]. 이와 함께 메타게놈 분석과 단일세포 지도를 결합한 연구는 점막 면역을 미생물군의 맥락 속에서 통합적으로 이해할 수 있게 한다[124].
생체 외에서는 위 내강 측의 산성 환경을 보존하면서 H. pylori의 지속적인 집락 형성을 유지할 수 있는 항상성 오가노이드-온-어-칩 체계가 생리적인 실험 플랫폼을 제공한다. 이러한 플랫폼에서는 면역세포를 함께 배양할 수 있으며, 임상 적용에 앞서 항생제, 위산 억제 전략, 점막 면역증강제 및 MAIT/MR1 표적 중재법을 평가할 수 있다[125,128].
종합하면, 이러한 첨단 기술을 진료지침에 부합하는 항생제 치료, 선택적 면역조절제 및 백신 개발과 통합하는 것은 집단 수준의 획일적인 진료에서 벗어나 면역학적 정보에 기반한 조직 표적 방식으로 H. pylori 관련 질환을 관리할 수 있는 실질적인 경로를 제시한다.
<Abstract>
Helicobacter pylori (H. pylori) is a globally prevalent bacterium that causes chronic infection and, while often asymptomatic, is a major cause of gastritis, peptic ulcer disease, and a risk factor for gastric adenocarcinoma and mucosa-associated lymphoid tissue (MALT) lymphoma. Infection triggers robust innate and adaptive immune responses in the gastric mucosa, including immune cell recruitment and pro-inflammatory cytokine production; however, the bacterium frequently persists by evading host immunity through mechanisms such as CagA-mediated epithelial damage and modulation of heat shock proteins. This review examines the interplay between mucosal immunity and H. pylori, with a particular focus on the unique functional roles of mucosa-associated invariant T (MAIT) cells in orchestrating host defense. We also explore therapeutic strategies that leverage mucosal immunity to combat H. pylori, including immune-based interventions to eradicate infection and approaches targeting H. pylori-associated diseases, such as gastric cancer, autoimmune disorders, and peptic ulcer disease.
Keywords: Helicobacter pylori; cell therapy; gastric adenocarcinoma; immune evasion; mucosa-associated invariant T (MAIT) cell; mucosal immunity; ulcer.
References
1. Chen Y-C, Malfertheiner P, Yu H-T, Kuo C-L, Chang Y-Y, Meng F-T, et al. Global prevalence of Helicobacter pylori infection and incidence of gastric cancer between 1980 and 2022. Gastroenterology. (2024) 166:605–19. doi: 10.1053/j.gastro.2023.12.022
2. Borka Balas R, Meliț LE, Mărginean CO. Worldwide prevalence and risk factors of Helicobacter pylori infection in children. Child (Basel Switzerland). (2022) 9:1359. doi: 10.3390/children9091359
3. Wroblewski LE, Peek RMJ, Wilson KT. Helicobacter pylori and gastric cancer: factors that modulate disease risk. Clin Microbiol Rev. (2010) 23:713–39. doi: 10.1128/ CMR.00011-10
4. Reyes VE. Helicobacter pylori and its role in gastric cancer. Microorganisms. (2023) 11:1312. doi: 10.3390/microorganisms11051312
5. Farinha P, Gascoyne RD. Helicobacter pylori and MALT lymphoma. Gastroenterology. (2005) 128:1579–605. doi: 10.1053/j.gastro.2005.03.083
6. Hu Q, Zhang Y, Zhang X, Fu K. Gastric mucosa-associated lymphoid tissue lymphoma and Helicobacter pylori infection: a review of current diagnosis and management. biomark Res. (2016) 4:15. doi: 10.1186/s40364-016-0068-1
7. Lee Y-C, Liou J-M, Wu M-S, Wu C-Y, Lin J-T. Eradication of helicobacter pylori to prevent gastroduodenal diseases: hitting more than one bird with the same stone. Therap Adv Gastroenterol. (2008) 1:111–20. doi: 10.1177/1756283X08094880
8. Papatheodoridis G-V, Archimandritis A-J. Role of Helicobacter pylori eradication in aspirin or non-steroidal anti-inflammatory drug users. World J Gastroenterol. (2005) 11:3811–6. doi: 10.3748/wjg.v11.i25.3811
9. Lai KC, Lam SK, Chu KM, Wong BCY, Hui WM, Hu WHC, etal. Lansoprazole for the prevention of recurrences of ulcer complications from long-term low-dose aspirin use. N Engl J Med. (2002) 346:2033–8. doi: 10.1056/NEJMoa012877
10. Moyat M, Velin D. Immune responses to Helicobacter pylori infection. World J Gastroenterol. (2014) 20:5583–93. doi: 10.3748/wjg.v20.i19.5583
11. Wei Y-F, Li X, Zhao M-R, Liu S, Min L, Zhu S-T, et al. Helicobacter pylori disrupts gastric mucosal homeostasis by stimulating macrophages to secrete CCL3. Cell Commun Signal. (2024) 22:263. doi: 10.1186/s12964-024-01627-5
12. Huang Y, Hu Y. Impact of helicobacter pylori infection on the efficacy of ICIs in gastric cancer. BMC Cancer. (2025) 25:1101. doi: 10.1186/s12885-025-14436-x
13. Wang F, Meng W, Wang B, Qiao L. Helicobacter pylori-induced gastric inflam mation and gastric cancer. Cancer Lett. (2014) 345:196–202. doi: 10.1016/ j.canlet.2013.08.016
14. Deng R, Zheng H, Cai H, Li M, Shi Y, Ding S. Effects of helicobacter pylori on tumor microenvironment and immunotherapy responses. Front Immunol. (2022) 13:923477. doi: 10.3389/fimmu.2022.923477
15. Zhang Y,Yan Z,Jiao Y, Feng Y, ZhangS, Yang A. Innate immunity in Helicobacter pylori infection and gastric oncogenesis. Helicobacter. (2025) 30:e70015. doi: 10.1111/ hel.70015
16. Fan J, Zhu J, Xu H. Strategies of Helicobacter pylori in evading host innate and adaptive immunity: insights and prospects for therapeutic targeting. Front Cell Infect Microbiol. (2024) 14:1342913. doi: 10.3389/fcimb.2024.1342913
17. Müller A, Oertli M, Arnold IC. H. pylori exploits and manipulates innate and adaptive immune cell signaling pathways to establish persistent infection. Cell Commun Signal. (2011) 9:25. doi: 10.1186/1478-811X-9-25
18. Soares J-B, Pimentel-Nunes P, Roncon-Albuquerque R, Leite-Moreira A. The role of lipopolysaccharide/toll-like receptor 4 signaling in chronic liver diseases. Hepatol Int. (2010) 4:659–72. doi: 10.1007/s12072-010-9219-x
19. Zamyatina A, Heine H. Lipopolysaccharide recognition in the crossroads of TLR4 andCaspase-4/11mediated inflammatory pathways. Front Immunol. (2020) 11:585146. doi: 10.3389/fimmu.2020.585146
20. Siggins MK, Sriskandan S. Bacterial lymphatic metastasis in infection and immu nity. Cells. (2021) 11:33. doi: 10.3390/cells11010033
21. Wilson KT, Crabtree JE. Immunology of Helicobacter pylori: insights into the failure of the immune response and perspectives on vaccine studies. Gastroenterology. (2007) 133:288–308. doi: 10.1053/j.gastro.2007.05.008
22. Lina TT, Alzahrani S, Gonzalez J, Pinchuk IV, Beswick EJ, Reyes VE. Immune evasion strategies used by Helicobacter pylori. World J Gastroenterol. (2014) 20:12753 66. doi: 10.3748/wjg.v20.i36.12753
23. Sirit IS, Peek RM. Decoding the ability of Helicobacter pylori to evade immune recognition and cause disease. Cell Mol Gastroenterol Hepatol. (2025) 19:101470. doi: 10.1016/j.jcmgh.2025.101470
24. Fang Y, Chen Y, Niu S, Lyu Z, Tian Y, Shen X, et al. Biological functions and therapeutic applications of human mucosal-associated invariant T cells. J BioMed Sci. (2025) 32:32. doi: 10.1186/s12929-025-01125-x
25. Li Y-R, Zhou K, Wilson M, Kramer A, ZhuY, DawsonN, et al. Mucosal-associated invariant T cells for cancer immunotherapy. Mol Ther. (2022) 31:631–646. doi: 10.1016/j.ymthe.2022.11.019
26. Li Y-R, Shen X, Zhu Y, Lyu Z, Yang L. The microbiota shapes the life trajectory of mucosal-associated invariant T cells. Trends Microbiol. (2025) 33:903–919. doi: 10.1016/j.tim.2025.03.011
27. Alzahrani S, Lina TT, Gonzalez J, Pinchuk IV, Beswick EJ, Reyes VE. Effect of Helicobacter pylori on gastric epithelial cells. World J Gastroenterol. (2014) 20:12767 80. doi: 10.3748/wjg.v20.i36.12767
28. Salama NR, Hartung ML, Müller A. Life in the human stomach: persistence strategies of the bacterial pathogen Helicobacter pylori. Nat Rev Microbiol. (2013) 11:385–99. doi: 10.1038/nrmicro3016
29. Posselt G, Backert S, Wessler S. The functional interplay of Helicobacter pylori factors with gastric epithelial cells induces a multi-step process in pathogenesis. Cell Commun Signal. (2013) 11:77. doi: 10.1186/1478-811X-11-77
30. Frauenlob T, Neuper T, Regl C, Schaepertoens V, Unger MS, Oswald A-L, et al. Helicobacter pylori induces a novel form of innate immune memory via accumulation of NF-кBproteins.Front Immunol. (2023) 14:1290833. doi: 10.3389/fimmu.2023.1290833
31. Elbehiry A, Marzouk E, Abalkhail A. Unraveling Helicobacter pylori: insights into pathogenesis, immune evasion, and progress toward effective vaccination. Vaccines. (2025) 13:725. doi: 10.3390/vaccines13070725
32. Wu X, Gou G, Wen M, Wang F, Liu Y, Li L, et al. The immunoregulatory role of helper T cells in Helicobacter pylori infection. Front Immunol. (2025) 16:1593727. doi: 10.3389/fimmu.2025.1593727
33. Gao Y, Williams AP. Role of innate T cells in anti-bacterial immunity. Front Immunol. (2015) 6:302. doi: 10.3389/fimmu.2015.00302
34. Toubal A, Nel I, Lotersztajn S, Lehuen A. Mucosal-associated invariant T cells and disease. Nat Rev Immunol. (2019) 19:643–57. doi: 10.1038/s41577-019-0191-y
35. Zumwalde NA, Haag JD, Gould MN, Gumperz JE. Mucosal associated invariant T cells from human breast ducts mediate a Th17-skewed response to bacterially exposed breast carcinoma cells. Breast Cancer Res. (2018) 20:111. doi: 10.1186/s13058-018 1036-5
36. Walker LJ, Kang Y-H, Smith MO, Tharmalingham H, Ramamurthy N, Fleming VM, et al. Human MAIT and CD8aa cells develop from a pool of type-17 precommitted CD8+ T cells. Blood. (2012) 119:422–33. doi: 10.1182/blood-2011-05 353789
37. Serriari N-E, Eoche M, Lamotte L, Lion J, Fumery M, Marcelo P, et al. Innate mucosal-associated invariant T (MAIT) cells are activated in inflammatory bowel diseases. Clin Exp Immunol. (2014) 176:266–74. doi: 10.1111/cei.12277
38. Walkenhorst M, Sonner JK, Meurs N, Engler JB, Bauer S, Winschel I, et al. Protective effect of TCR-mediated MAIT cell activation during experimental autoim mune encephalomyelitis. Nat Commun. (2024) 15:9287. doi: 10.1038/s41467-024 53657-9
39. Leeansyah E, Ganesh A, Quigley MF, Sönnerborg A, Andersson J, Hunt PW, et al. Activation, exhaustion, and persistent decline of the antimicrobial MR1-restricted MAIT-cell population in chronic HIV-1 infection. Blood. (2013) 121:1124–35. doi: 10.1182/blood-2012-07-445429
40. De Biasi S, Gibellini L, Lo Tartaro D, Puccio S, Rabacchi C, Mazza EMC, et al. Circulating mucosal-associated invariant T cells identify patients responding to anti PD-1 therapy. Nat Commun. (2021) 12:1669. doi: 10.1038/s41467-021-21928-4
41. Tastan C, Karhan E, Zhou W, Fleming E, Voigt AY, Yao X, et al. Tuning of human MAIT cell activation by commensal bacteria species and MR1-dependent T-cell presentation. Mucosal Immunol. (2018) 11:1591–605. doi: 10.1038/s41385-018-0072-x
42. Jeffery HC, van Wilgenburg B, Kurioka A, Parekh K, Stirling K, Roberts S, et al. Biliary epithelium and liver B cells exposed to bacteria activate intrahepatic MAIT cells through MR1. J Hepatol. (2016) 64:1118–27. doi: 10.1016/j.jhep.2015.12.017
43. Gao M, Zhao X. Insights into the tissue repair features of MAIT cells. Front Immunol. (2024) 15:1432651. doi: 10.3389/fimmu.2024.1432651
44. du Halgouet A, Darbois A, Alkobtawi M, Mestdagh M, Alphonse A, Premel V, et al. Role of MR1-driven signals and amphiregulin on the recruitment and repair function of MAIT cells during skin wound healing. Immunity. (2023) 56:78–92.e6. doi: 10.1016/j.immuni.2022.12.004
45. Legoux F, Salou M, Lantz O. MAIT cell development and functions: the microbial connection. Immunity. (2020) 53:710–23. doi: 10.1016/j.immuni.2020.09.009
46. Hinks TSC, Zhang X-W. MAIT cell activation and functions. Front Immunol. (2020) 11. doi: 10.3389/fimmu.2020.01014
47. Booth JS, Salerno-Goncalves R, Blanchard TG, Patil SA, Kader HA, Safta AM, et al. Mucosal-associated invariant T cells in the human gastric mucosa and blood: role in Helicobacter pylori infection. Front Immunol. (2015) 6:466. doi: 10.3389/ fimmu.2015.00466
48. Ming S, Zhang M, Liang Z, Li C, He J, Chen P, et al. OX40L/OX40 signal promotes IL-9 production by mucosal MAIT cells during Helicobacter pylori infection. Front Immunol. (2021) 12:626017. doi: 10.3389/fimmu.2021.626017
49. Legoux F, Gilet J, Procopio E, Echasserieau K, Bernardeau K, Lantz O. Molecular mechanisms of lineage decisions in metabolite-specific T cells. Nat Immunol. (2019) 20:1244–55. doi: 10.1038/s41590-019-0465-3
50. Gnirck A-C, Philipp M-S, Waterhölter A, Wunderlich M, Shaikh N, Adamiak V, et al. Mucosal-associated invariant T cells contribute to suppression of inflammatory myeloid cells in immune-mediated kidney disease. Nat Commun. (2023) 14:7372. doi: 10.1038/s41467-023-43269-0
51. Godfrey DI, Uldrich AP, McCluskey J, Rossjohn J, Moody DB. The burgeoning family of unconventional T cells. Nat Immunol. (2015) 16:1114–23. doi: 10.1038/ ni.3298
52. Hagel JP, Garner LC, Bilton M, Mehta H, Leng T, Hackstein C-P, et al. Human MAIT cell activation in vitro. Methods Mol Biol. (2020) 2098:97–124. doi: 10.1007/978 1-0716-0207-2_7
53. Legoux F, Bellet D, Daviaud C, El Morr Y, Darbois A, Niort K, et al. Microbial metabolites control the thymic development of mucosal-associated invariant T cells. Science. (2019) 366:494–9. doi: 10.1126/science.aaw2719
54. Ruf B, Catania VV, Wabitsch S, Ma C, Diggs LP, Zhang Q, et al. Activating mucosal-associated invariant T cells induces a broad antitumor response. Cancer Immunol Res. (2021) 9:1024–34. doi: 10.1158/2326-6066.CIR-20-0925
55. Yan J, Allen S, McDonald E, Das I, Mak JYW, Liu L, et al. MAIT cells promote tumor initiation, growth, and metastases via tumor MR1. Cancer Discov. (2020) 10:124–41. doi: 10.1158/2159-8290.CD-19-0569
56. Li Y-R, Zhou Y, Yu J, Kim YJ, Li M, Lee D, et al. Generation of allogeneic CAR NKT cells from hematopoietic stem and progenitor cells using a clinically guided culture method. Nat Biotechnol. (2024) 43:329–344. doi: 10.1038/s41587-024-02226-y
57. Li Y-R, Zhu Y, Halladay T, Yang L. In vivo CAR engineering for immunotherapy. Nat Rev Immunol. (2025) 25:725–744. doi: 10.1038/s41577-025-01174-1
58. Li Y-R, Wilson M, Yang L. Target tumor microenvironment by innate T cells. Front Immunol. (2022) 13:999549. doi: 10.3389/fimmu.2022.999549
59. Li Y-R, Zhu Y, Chen Y, Yang L. The clinical landscape of CAR-engineered unconventional T cells. Trends Cancer. (2025) 11:520–539. doi: 10.1016/ j.trecan.2025.03.001
60. Godfrey DI, Le Nours J, Andrews DM, Uldrich AP, Rossjohn J. Unconventional T cell targets for cancer immunotherapy. Immunity. (2018) 48:453–73. doi: 10.1016/ j.immuni.2018.03.009
61. Chen Y, Zhu Y, Li Y-R. The Role of Innate T Cells in Cancer BT- Handbook of Cancer and Immunology. Rezaei N, editor. Cham: Springer International Publishing (2022) p. 1–18. doi: 10.1007/978-3-030-80962-1_365-1
62. Li Y-R, Brown J, Yu Y, Lee D, Zhou K, Dunn ZS, et al. Targeting immunosup pressive tumor-associated macrophages using innate T cells for enhanced antitumor reactivity. Cancers. (2022) 14:2749. doi: 10.3390/cancers14112749
63. Dogan M, Karhan E, Kozhaya L, Placek L, Chen X, Yigit M, et al. Engineering human MAIT cells with chimeric antigen receptors for cancer immunotherapy. J Immunol. (2022) 209:1523–31. doi: 10.4049/jimmunol.2100856
64. Bohineust A, Tourret M, Derivry L, Caillat-Zucman S. Mucosal-associated invar iant T (MAIT) cells, a new source of universal immune cells for chimeric antigen receptor (CAR)-cell therapy. Bull Cancer. (2021) 108:S92–5. doi: 10.1016/ j.bulcan.2021.07.003
65. Fang Y, Zhu Y, Kramer A, Chen Y, Li Y-R, Yang L. Graft-versus-host disease modulation by innate T cells. Int J Mol Sci. (2023) 24:4084. doi: 10.3390/ijms24044084
66. Li Y-R, Dunn ZS, Zhou Y, Lee D, Yang L. Development of stem cell-derived immune cells for off-the-shelf cancer immunotherapies. Cells. (2021) 10:3497. doi: 10.3390/cells10123497
67. Kawaguchi K, Umeda K, Hiejima E, Iwai A, Mikami M, Nodomi S, et al. Influence of post-transplant mucosal-associated invariant T cell recovery on the development of acute graft-versus-host disease in allogeneic bone marrow transplantation. Int J Hematol. (2018) 108:66–75. doi: 10.1007/s12185-018-2442-2
68. Mengge G, Hong Y, Sun Y, Kong J, Yan C, Wang Z, et al. The low number of mucosal-associated invariant T cells in the graft was associated with occurrence of gut graft-versus-host disease. Blood. (2019) 134:2001. doi: 10.1182/blood-2019-127722
69. Li Y-R, Zhu Y, Fang Y, Lyu Z, Yang L. Emerging trends in clinical allogeneic CAR cell therapy. Med (New York NY). (2025) 6:100677. doi: 10.1016/j.medj.2025.100677
70. Chey WD, Leontiadis GI, Howden CW, Moss SF. ACG clinical guideline: Treatment of Helicobacter pylori infection. Am J Gastroenterol. (2017) 112:212–39. doi: 10.1038/ajg.2016.563
71. Bjorkman DJ, Steenblik M. Best practice recommendations for diagnosis and management of Helicobacter pylori-synthesizing the guidelines. Curr Treat Options Gastroenterol. (2017) 15:648–59. doi: 10.1007/s11938-017-0157-8
72. Graham DY. Hp-normogram (normo-graham) for assessing the outcome of H. pylori therapy: Effect of resistance, duration, and CYP2C19 genotype. Helicobacter. (2016) 21:85–90. doi: 10.1111/hel.12287
73. Malfertheiner P, Megraud F, Rokkas T, Gisbert JP, Liou J-M, Schulz C, et al. Management of Helicobacter pylori infection: The Maastricht VI/Florence consensus report. Gut. (2022) 71:1724–1762. doi: 10.1136/gutjnl-2022-327745
74. YuY,XueJ,Lin F,Liu D, Zhang W,RuS,etal. Global primary antibiotic resistance rate of Helicobacter pylori in recent 10 years: A systematic review and meta-analysis. Helicobacter. (2024) 29:e13103. doi: 10.1111/hel.13103
75. Nyssen OP, Bordin D, Tepes B, Pérez-Aisa Á , Vaira D, Caldas M, et al. European registry on Helicobacter pylori management (Hp-EuReg): Patterns and trends in first line empirical eradication prescription and outcomes of 5 years and 21 533 patients. Gut. (2021) 70:40–54. doi: 10.1136/gutjnl-2020-321372
76. Nyssen OP, Pratesi P, Spı́nola MA, Jonaitis L, Pérez-Aı́sa Á , Vaira D, et al. Analysis of clinical phenotypes through machine learning of first-line H. pylori treatment in Europe during the period 2013-2022: Data from the European registry on H. pylori management (Hp-EuReg). Antibiot (Basel Switzerland). (2023) 12:1427. doi: 10.3390/ antibiotics12091427
77. Chey WD, Mégraud F, Laine L, López LJ, Hunt BJ, Howden CW. Vonoprazan triple and dual therapy for Helicobacter pylori infection in the United States and Europe: Randomized clinical trial. Gastroenterology. (2022) 163:608–19. doi: 10.1053/ j.gastro.2022.05.055
78. Laine L, Sharma P, MulfordDJ, Hunt B, Leifke E, SmithN, et al. Pharmacodynamics and pharmacokinetics of the potassium-competitive acid blocker vonoprazan and the proton pump inhibitor lansoprazole in US subjects. Am J Gastroenterol. (2022) 117:1158–61. doi: 10.14309/ajg.0000000000001735
79. Chey WD, Howden CW, Moss SF, Morgan DR, Greer KB, Grover S, et al. ACG clinical guideline: Treatment of Helicobacter pylori infection. Am J Gastroenterol. (2024) 119:1730–53. doi: 10.14309/ajg.0000000000002968
80. Sakurai Y, Mori Y, Okamoto H, Nishimura A, Komura E, Araki T, et al. Acid inhibitory effects of vonoprazan 20 mg compared with esomeprazole 20 mg or rabeprazole 10 mg in healthy adult male subjects–a randomised open-label cross over study. Aliment Pharmacol Ther. (2015) 42:719–30. doi: 10.1111/apt.13325
81. Contreras M, Mujica H, Garcı́a-Amado MA. Molecular tools of antibiotic resis tance for Helicobacter pylori: An overview in Latin America. Front Gastroenterol. (2024) 3. doi: 10.3389/fgstr.2024.1410816
82. Suez J, Zmora N, Zilberman-Schapira G, Mor U, Dori-Bachash M, Bashiardes S, et al. Post-antibiotic gut mucosal microbiome reconstitution is impaired by probiotics and improved by autologous FMT. Cell. (2018) 174:1406–1423.e16. doi: 10.1016/ j.cell.2018.08.047
83. Yang Z, Zhou Y, Han Z, He K, Zhang Y, Wu D, et al. The effects of probiotics supplementation on Helicobacter pylori standard treatment: An umbrella review of systematic reviews with meta-analyses. Sci Rep. (2024) 14:10069. doi: 10.1038/s41598 024-59399-4
84. Tanashat M, Abuelazm M, Abouzid M, Al-Ajlouni YA, Ramadan A, Alsalah S, et al. Efficacy of probiotics regimens for Helicobacter pylori eradication: A systematic review, pairwise, and network meta-analysis of randomized controlled trials. Clin Nutr ESPEN. (2025) 65:424–44. doi: 10.1016/j.clnesp.2024.11.016
85. Hablass FH, Lashen SA, Alsayed EA. Efficacy of lactoferrin with standard triple therapy or sequential therapy for Helicobacter pylori eradication: A randomized controlled trial. Turkish J Gastroenterol Off J Turkish Soc Gastroenterol. (2021) 32:742–9. doi: 10.5152/tjg.2021.20923
86. Imoto I, Yasuma T, D’Alessandro-Gabazza CN, Oka S, Misaki M, Horiki N, et al. Antimicrobial effects of lactoferrin against Helicobacter pylori infection. Pathog (Basel Switzerland). (2023) 12:599. doi: 10.3390/pathogens12040599
87. Zhou A, Li L, Zhao G, Min L, Liu S, Zhu S, et al. Vitamin D3 inhibits Helicobacter pylori infection by activating the VitD3/VDR-CAMP pathway in mice. Front Cell Infect Microbiol. (2020) 10:566730. doi: 10.3389/fcimb.2020.566730
88. Zhang Y, Wang C, Zhang L, Yu J, Yuan W, Li L. Vitamin D(3) eradicates Helicobacter pylori by inducing VDR-CAMP signaling. Front Microbiol. (2022) 13:1033201. doi: 10.3389/fmicb.2022.1033201
89. Nishizawa T, Nishizawa Y, Yahagi N, Kanai T, Takahashi M, Suzuki H. Effect of supplementation with rebamipide for Helicobacter pylori eradication therapy: A systematic review and meta-analysis. J Gastroenterol Hepatol. (2014) 29:20–4. doi: 10.1111/jgh.12769
90. Andreev DN, Maev IV, Dicheva DT. Efficiency of the inclusion of rebamipide in the eradication therapy for Helicobacter pylori infection: Meta-analysis of randomized controlled studies. J Clin Med. (2019) 8:1498. doi: 10.3390/jcm8091498
91. Gong J, Wang Q, Chen X, Lu J. Helicobacter pylori vaccine: Mechanism of pathogenesis, immune evasion and analysis of vaccine types. Vaccines. (2025) 13:526. doi: 10.3390/vaccines13050526
92. Zeng M, Mao X-H, Li J-X, Tong W-D, Wang B, Zhang Y-J, et al. Efficacy, safety, and immunogenicity of an oral recombinant Helicobacter pylori vaccine in children in China: A randomised, double-blind, placebo-controlled, phase 3 trial. Lancet (London England). (2015) 386:1457–64. doi: 10.1016/S0140-6736(15)60310-5
93. Talebi Bezmin Abadi A, Lee YY. Chinese Helicobacter pylori vaccine: Solution for an old challenge? World J Gastrointest Pharmacol Ther. (2016) 7:412–5. doi: 10.4292/ wjgpt.v7.i3.412
94. Hasanzadeh Haghighi F, Menbari S, Mohammadzadeh R, Pishdadian A, Farsiani H. Developing a potent vaccine against Helicobacter pylori: Critical considerations and challenges. Expert Rev Mol Med. (2024) 27:e12. doi: 10.1017/erm.2024.19
95. Zhang H, Liu Z, Li Y, Tao Z, Shen L, Shang Y, et al. Adjuvants for Helicobacter pylori vaccines: Outer membrane vesicles provide an alternative strategy. Virulence. (2024) 15:2425773. doi: 10.1080/21505594.2024.2425773
96. Lavelle EC, Ward RW. Mucosal vaccines- fortifying the frontiers. Nat Rev Immunol. (2022) 22:236–50. doi: 10.1038/s41577-021-00583-2
97. Codolo G, Coletta S, D’Elios MM, de Bernard M. HP-NAP of Helicobacter pylori: The power of the immunomodulation. Front Immunol. (2022) 13:944139. doi: 10.3389/ fimmu.2022.944139
98. Ruenraroengsak P, Cook JM, Florence AT. Nanosystem drug targeting: Facing up to complex realities. J Control Release Off J Control Release Soc. (2010) 141:265–76. doi: 10.1016/j.jconrel.2009.10.032
99. Jebali A, Esmaeilzadeh A, Esmaeilzadeh MK, Shabani S. Immunoinformatics design and synthesis of a multi-epitope vaccine against Helicobacter pylori based on lipid nanoparticles. Sci Rep. (2024) 14:17910. doi: 10.1038/s41598-024-68947-x
100. Ni X, Liu Y, Sun M, Jiang Y, Wang Y, Ke D, et al. Oral live-carrier vaccine of recombinant Lactococcus lactis inducing prophylactic protective immunity against Helicobacter pylori infection. Probiotics Antimicrob Proteins. (2024) 17:4111–4123. doi: 10.1007/s12602-024-10360-x
101. Zhang Z, Cui M, Ji X, Su G, Zhang Y-X, Du L. Candidate antigens and the development of Helicobacter pylori vaccines. Helicobacter. (2024) 29:e13128. doi: 10.1111/hel.13128
102. Liu M, ZhongY,ChenJ,LiuY,TangC,WangX,etal.Oralimmunization of mice with a multivalent therapeutic subunit vaccine protects against Helicobacter pylori infection. Vaccine. (2020) 38:3031–41. doi: 10.1016/j.vaccine.2020.02.036
103. Friedrich V, Gerhard M. Vaccination against Helicobacter pylori- an approach for cancer prevention? Mol Aspects Med. (2023) 92:101183. doi: 10.1016/ j.mam.2023.101183
104. Michetti P, Kreiss C, Kotloff KL, Porta N, Blanco JL, Bachmann D, et al. Oral immunization with urease and Escherichia coli heat-labile enterotoxin is safe and immunogenic in Helicobacter pylori-infected adults. Gastroenterology. (1999) 116:804 12. doi: 10.1016/s0016-5085(99)70063-6
105. Sutton P, Boag JM. Status of vaccine research and development for Helicobacter pylori. Vaccine. (2019) 37:7295–9. doi: 10.1016/j.vaccine.2018.01.001
106. Clements JD, Norton EB. The mucosal vaccine adjuvant LT(R192G/L211A) or dmLT. mSphere. (2018) 3:e00215-18. doi: 10.1128/mSphere.00215-18
107. Moayyedi P, Lacy BE, Andrews CN, Enns RA, Howden CW, Vakil N. ACG and CAG clinical guideline: Management of dyspepsia. Am J Gastroenterol. (2017) 112:988 1013. doi: 10.1038/ajg.2017.154
108. Zagari RM, Dajti E, Cominardi A, Frazzoni L, Fuccio L, Eusebi LH, et al. Standard bismuth quadruple therapy versus concomitant therapy for the first-line treatment of Helicobacter pylori infection: A systematic review and meta-analysis of randomized controlled trials. J Clin Med. (2023) 12:3258. doi: 10.3390/jcm12093258
109. Losurdo G, Borraccino AV, Aloisio A, Russo F, Riezzo G, Galeano G, et al. Concomitant and bismuth quadruple therapy for Helicobacter pylori eradication in southern Italy: Preliminary data from a randomized clinical trial. Antibiot (Basel Switzerland). (2024) 13:348. doi: 10.3390/antibiotics13040348
110. Bland MV, Ismail S, Heinemann JA, Keenan JI. The action of bismuth against Helicobacter pylori mimics but is not caused by intracellular iron deprivation. Antimicrob Agents Chemother. (2004) 48:1983–8. doi: 10.1128/AAC.48.6.1983 1988.2004
111. Woo J, Bang CS, Lee JJ, Ahn JY, Kim JM, Jung H-Y, et al. In vitro susceptibility and synergistic effect of bismuth against Helicobacter pylori. Antibiot (Basel Switzerland). (2024) 13:1004. doi: 10.3390/antibiotics13111004
112. Shirley M. Vonoprazan: a review in Helicobacter pylori infection. Drugs. (2024) 84:319–27. doi: 10.1007/s40265-023-01991-5
113. Huang X-P, Liu Y-J, Lin S-W, Shao Y-F, Qiu F, Qiu Q-W, et al. Vonoprazan amoxicillin dual therapy for Helicobacter pylori eradication in Chinese population: A prospective, multicenter, randomized, two-stage study. World J Gastroenterol. (2024) 30:3304–13. doi: 10.3748/wjg.v30.i27.3304
114. Zhang J-Y, Chen J-H, Huang Y-L, Li J, Xu D, Xu Z, et al. Fourteen-day vonoprazan-amoxicillin dual therapy versus 14-day bismuth-based quadruple therapy for Helicobacter pylori treatment: a randomized clinical trial. Therap Adv Gastroenterol. (2025) 18:17562848251354868. doi: 10.1177/17562848251354868
115. Binmaeil H, Hanafiah A, Mohamed Rose I, Raja Ali RA. Development and validation of multiplex quantitative PCR assay for detection of Helicobacter pylori and mutations conferring resistance to clarithromycin and levofloxacin in gastric biopsy. Infect Drug Resist. (2021) 14:4129–45. doi: 10.2147/IDR.S325056
116. Nyssen OP,Espada M,Gisbert JP. Empirical vs. susceptibility-guided treatment of Helicobacter pylori infection: A systematic review and meta-analysis. Front Microbiol. (2022) 13:913436. doi: 10.3389/fmicb.2022.913436
117. Ouyang Y, Zhang W, He C, Zhu Y, Lu N, Hu Y. Susceptibility-guided therapy vs. bismuth-containing quadruple therapy as the first-line treatment for Helicobacter pylori infection: A systematic review and meta-analysis. Front Med. (2022) 9:844915. doi: 10.3389/fmed.2022.844915
118. Mommersteeg MC, Nieuwenburg SV, Wolters LMM, Roovers BHCM, van Vuuren HAJ, Verhaar AP, et al. The use of non-invasive stool tests for verification of Helicobacter pylori eradication and clarithromycin resistance. United Eur Gastroenterol J. (2023) 11:894–903. doi: 10.1002/ueg2.12473
119. Fontes LES, Martimbianco ALC, Zanin C, Riera R. N-acetylcysteine as an adjuvant therapy for Helicobacter pylori eradication. Cochrane Database Syst Rev. (2019) 2:CD012357. doi: 10.1002/14651858.CD012357.pub2
120. Biswas DP, TkDS. Theefficacy of adjuvant N acetyl cysteine for the eradication of H pylori infections: A systematic review and meta-analysis of randomized clinical trials. Clin Res Hepatol Gastroenterol. (2022) 46:101832. doi: 10.1016/j.clinre.2021.101832
121. Tsubosaka A, Komura D, Kakiuchi M, Katoh H, Onoyama T, Yamamoto A, et al. Stomach encyclopedia: Combined single-cell and spatial transcriptomics reveal cell diversity and homeostatic regulation of human stomach. Cell Rep. (2023) 42:113236. doi: 10.1016/j.celrep.2023.113236
122. Li N, Chen S, Xu X, Wang H, Zheng P, Fei X, et al. Single-cell transcriptomic profiling uncovers cellular complexity and microenvironment in gastric tumorigenesis associated with Helicobacter pylori. J Adv Res. (2025) 74:471–91. doi: 10.1016/ j.jare.2024.10.012
123. Hu W, Chen ZM, Wang Y, Yang C, Wu ZY, You LJ, et al. Single-cell RNA sequencing dissects the immunosuppressive signatures in Helicobacter pylori-infected human gastric ecosystem. Nat Commun. (2025) 16:3903. doi: 10.1038/s41467-025 59339-4
124. Sorini C, Tripathi KP, Wu S, Higdon SM, Wang J, Cheng L, et al. Metagenomic and single-cell RNA-Seq survey of the Helicobacter pylori-infected stomach in asymptomatic individuals. JCI Insight. (2023) 8:e161042. doi: 10.1172/jci.insight.161042
125. Hofer M, KimY,Broguiere N, Gorostidi F, Klein JA, Amieva MR, et al. Accessible homeostatic gastric organoids reveal secondary cell type-specific host-pathogen inter actions in Helicobacter pylori infections. Nat Commun. (2025) 16:2767. doi: 10.1038/ s41467-025-57131-y
126. IdowuS, Bertrand PP, Walduck AK. Gastric organoids: Advancing the study of H. pylori pathogenesis and inflammation. Helicobacter. (2022) 27:e12891. doi: 10.1111/ hel.12891
127. Pang M-J, Burclaff JR, Jin R, Adkins-Threats M, Osaki LH, Han Y, et al. Gastric organoids: Progress and remaining challenges. Cell Mol Gastroenterol Hepatol. (2022) 13:19–33. doi: 10.1016/j.jcmgh.2021.09.005
128. Kulicke CA, Swarbrick GM, Ladd NA, Cansler M, Null M, Worley A, et al. Delivery of loaded MR1 monomer results in efficient ligand exchange to host MR1 and subsequent MR1T cell activation. Commun Biol. (2024) 7:228. doi: 10.1038/s42003 024-05912-4
129. Huang RJ, Wichmann IA, Su A, Sathe A, Shum MV, Grimes SM, et al. A spatial transcriptomic signature of 26 genes resolved at single-cell resolution characterizes high-risk gastric cancer precursors. NPJ Precis Oncol. (2025) 9:52. doi: 10.1038/s41698 025-00816-w